03-11
2026
面粉加工行业是怎么用酶和除酶的

面团里的酶,从不缺席

从烫面的那点甜,到面包改良剂里的六种酶:面食加工为什么绕不开酶


面粉看起来是"死"的。它安静地待在袋子里,只要不遇水,几乎所有生化反应都慢到可以忽略。一旦加水,面粉里那些被干燥"冻住"的酶就开始工作。

这些酶不是添加剂。它们在小麦灌浆时就已经被写进籽粒,磨成粉以后仍然留在面粉里。所以更准确的说法是:面食加工从来不是"要不要加酶"的问题,而是"酶在什么时候、以多大活性、作用于什么底物"的问题。

本文把这条线索拆成七段:面粉自带什么酶、烫面的甜从哪来、面条为什么避不开酶、酵母和面粉怎么分工、工业上补哪几种酶、标准化靠什么实现、以及"彻底无酶"要付什么代价。


一、面粉自带一套酶系统,加水就是开关

小麦籽粒里天然存在多种水解酶和氧化还原酶,主要包括 α-淀粉酶、β-淀粉酶、蛋白酶、脂肪酶、脂氧合酶、多酚氧化酶和植酸酶。这些酶在干燥面粉中的反应速率极低,原因是水分活度不足——酶需要水作为反应介质,也需要水让底物扩散到活性中心。加水、升温,这两个条件同时满足,酶就被启动了。

这里有一个容易被忽略的事实:面粉的酶活不是常数。同一品种在不同年份、不同产地,酶活可以差出很多。小麦成熟期遇到高温或降雨,籽粒会在穗上提前启动淀粉酶合成,行业里分别叫晚熟α-淀粉酶(late maturity α-amylase, LMA)和穗发芽。Newberry 等人在 2018 年的研究里指出,LMA 会使高分子量 TaAMY1 型 α-淀粉酶在糊粉层中持续存在,直接拉低降落数值(Falling Number),进而影响制粉和烘焙品质(Newberry et al.)。

降落数值因此成为制粉厂最常用的"读酶"指标:数值越低,说明 α-淀粉酶活性越高。这个指标之所以重要,是因为小麦内源酶的水平本身就处在一个很窄的适宜区间——低了发酵无力,高了面团发黏。

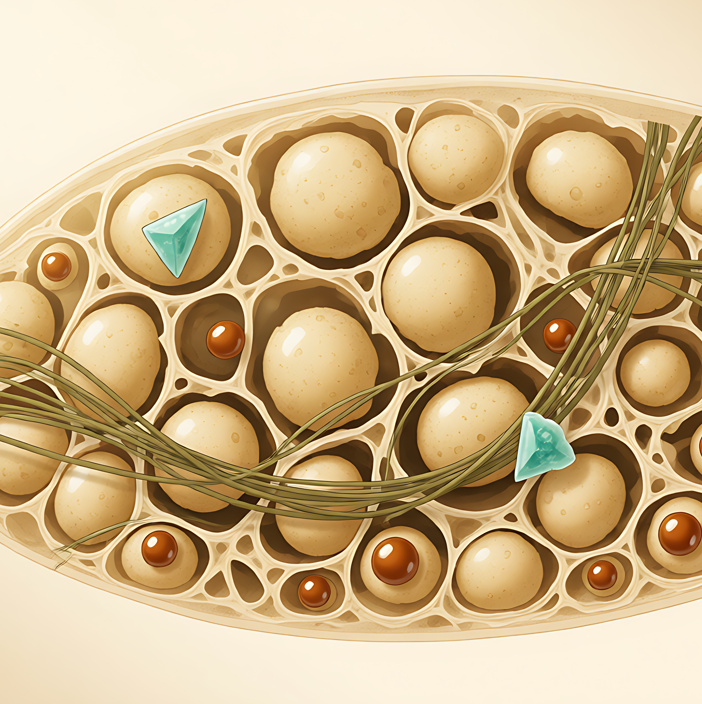
面粉微观结构示意:淀粉颗粒嵌在蛋白质基质中,加的水渗入后,酶分子(青色)开始从颗粒表面脱离并作用于淀粉边缘。示意图,非真实显微照片,比例经艺术处理。

二、烫面的甜:一次极短的酶反应窗口

用热水和面做烫面饼,成品会带一点回甜。这个现象值得仔细拆,因为它的因果链比通常说的要短。

第一步是可验证的:热水使淀粉糊化。生淀粉以致密的颗粒形式存在,淀粉酶难以接近;糊化打开颗粒结构以后,淀粉链才暴露出来,成为酶的良好底物。汤种面包工艺正是利用这一点——把部分面粉用热水调成糊,让淀粉预先糊化("汤种面包")。

第二步也是可验证的:小麦 β-淀粉酶的最适反应温度是 55 ℃,在 50 ℃ 保温 30 分钟会失去一半活性,55 ℃ 下的半衰期只有 23 分钟(Daba et al. 249–51)。β-淀粉酶是一种外切酶,它从淀粉链的非还原端依次切下 α-1,4 键,产物只有麦芽糖。麦芽糖的甜度约为蔗糖的三分之一,但它是实实在在的还原糖,舌头尝得出来。

两步叠在一起,结论就出来了:热水冲入面粉的瞬间,面团内部存在明显的温度梯度。只有那些温度落在 50–60 ℃ 区间、并且在 β-淀粉酶失活之前的那几分钟里,糊化的淀粉才会被切成麦芽糖。窗口很窄,但确实存在。

烫面的作用序列示意:热水注入干面粉,淀粉颗粒吸水膨胀、表面开裂糊化,随后被 β-淀粉酶切成双环状的麦芽糖分子并游离出来。图中所绘为机理示意,颗粒大小、分子形态与时间尺度均已放大处理,不代表真实比例。

这里必须纠正一个常见的说法。 很多科普把"烫面回甜"归因于两个来源:唾液淀粉酶和面粉内源淀粉酶。唾液淀粉酶不参与和面——它只在食物入口之后才接触面团,"越嚼越甜"是口腔里发生的事,无法用来解释面团里已经生成了糖。把这两件事并列,逻辑上是混的。烫面面团里如果确实有麦芽糖,只能是内源淀粉酶在加热过程中生成的。

至于酶解贡献了甜味的多少比例,目前没有公开的定量数据。 我在检索中没有找到测定烫面面团麦芽糖含量的研究。所以合理的表述是:机理成立,占比未知。烫面"回甜"的相当一部分,可能来自糊化淀粉更易被唾液消化的即时释放,而不是面团里预先积累的糖——这一条属于我的推断,不是实验结论。

三、面条:酶一直在场,只是没人给它署名

面条的制作过程看起来"温和":常温水、室温醒发、压片、切条。但正是常温和水分,给了内源酶最舒服的工作条件。制面工艺里的"熟化"环节,一部分作用就是让水分均匀分布、面筋松弛,同时也不可避免地让酶继续作用。

内源酶对面条的影响是双向的,而且负面居多:

酶类
过量时的后果
工业对策
α-淀粉酶、β-淀粉酶
面团黏度下降、煮面浑汤、断条
选用低淀粉酶活性的面条专用粉,控制降落数值
蛋白酶
水解面筋,湿面筋数量与质量下降,口感发软
控制面粉精度,避免使用发芽小麦
脂肪酶、脂氧合酶
游离脂肪酸升高、酸败;类胡萝卜素被氧化漂白
降低麸星与胚的混入,控制储藏条件
多酚氧化酶(PPO)
酚类物质氧化生成黑色素,面条放置后褐变
选育低 PPO 品种,提高制粉精度

多酚氧化酶这一条有明确的产业证据。澳大利亚谷物研究与发展中心(GRDC)的项目报告指出,白盐面和黄碱面的褐变同时取决于蛋白质含量、PPO 对酚类底物的氧化以及非 PPO 反应,其中 PPO 活性的遗传差异能解释大部分褐变差异(GRDC)。

所以"面条避不开酶"这句话是对的,但方向要改一下:面条加工对酶的态度不是"利用",而是"压制"。制粉厂提高精度、降低灰分,本质上就是在减少酶的载体——因为小麦的酶主要集中在糊粉层和胚里,麸星越少,带进面粉的酶越少。

四、酵母的酶:一场跨物种的分工

酵母在面团里的角色常被简化成"产气"。但酵母不能直接吃淀粉,它必须先等别人把淀粉切开。

面包面团中,淀粉被淀粉酶持续分解为低聚糖和麦芽糖,麦芽糖才是无糖面团里酵母的主要碳源(Ostergaard et al. 34–50)。这里的分工很清楚:面粉提供酶,酵母提供发酵能力。

酵母自身也确实带酶,但定位需要说准:

  • 转化酶(invertase,Suc2)
     定位在周质空间,也就是细胞膜外侧。蔗糖在细胞外被它水解成葡萄糖和果糖,这两种单糖再被转运进细胞(Ostergaard et al. 34–50)。
  • 麦芽糖酶(maltase,MalS)
     定位在细胞内。麦芽糖先由透性酶运进细胞,再由胞内麦芽糖酶水解。
  • 蛋白酶与肽酶
     主要位于液泡,用于分解吸收氮源。酵母利用面粉蛋白的能力有限,因为面粉蛋白在面团 pH 下溶解度很低。

因此"酵母胞内产生转化酶"这个说法是不准确的:转化酶的作用发生在细胞外围,产物才进入细胞。这个细节看着琐碎,但它决定了工程上的一个判断——想让酵母更快起发,直接补蔗糖不如补一点淀粉酶,因为后者能持续从淀粉里"放糖",而蔗糖是一次性的。

五、添加的酶:把不可控变成可计算

面粉的酶活随年份和产地波动,这对手工制作影响不大,对日产量几十万个面包的工厂就是灾难。现代烘焙工业的解法是:不再依赖面粉自带的酶,而是把需要的酶按功能和剂量补进去。

目前工业上使用最广的几类酶,作用机理和效果如下:

酶
EC 编号
作用底物与机理
产品层面的效果
真菌 α-淀粉酶
3.2.1.1
水解破损淀粉为糊精和低聚糖
为酵母持续供糖,增大体积,改善表皮色泽
麦芽糖淀粉酶
3.2.1.1(来源不同)
修饰支链淀粉外侧链,减缓淀粉回生
延缓老化,延长货架期柔软度
木聚糖酶
3.2.1.8
水解阿拉伯木聚糖主链,释放结合水
改善面团延展性与持气性,提高体积
葡萄糖氧化酶
1.1.3.4
氧化葡萄糖生成葡萄糖酸内酯和过氧化氢,氧化面筋蛋白巯基形成二硫键
增强筋力与面团稳定性,可替代化学氧化剂
脂肪酶
3.1.1.3
水解甘油三酯,原位生成单甘酯等极性脂
面团更稳定,瓤更细白,体积增大
蛋白酶
3.4
有限水解面筋蛋白
弱化过强面筋,缩短搅拌时间;饼干中防止收缩变形
谷氨酰胺转氨酶
2.3.2.13
催化蛋白质分子间交联
强化无麸质面团与冷冻面团的结构

这张表里的每一条都有文献支撑。Chowdhury 等人在 2024 年的综述中系统梳理了这几类酶在面团流变学、发酵、质构和货架期四个维度上的作用,并特别指出酶制剂正在替代化学氧化剂和部分乳化剂,以适应清洁标签的需求(Chowdhury et al.)。

酶的四个作用靶点示意:橄榄色扁平织带代表阿拉伯木聚糖纤维束,浅金色宽带代表面筋蛋白网络,圆形颗粒为淀粉粒,琥珀色球滴为脂质;青色方块示意酶分子分别附着在四类底物上。本图为机理示意,非真实显微照片,各组分尺寸与数量比例经简化处理。

其中两条机理值得单独说:

葡萄糖氧化酶为什么能"增强筋道"。 它把葡萄糖氧化成葡萄糖酸内酯,同时释放过氧化氢;过氧化氢进一步氧化面筋蛋白中的巯基,促使其形成二硫键交联。面筋网络因此变得更紧密,持气能力上升。这条路径替代的是溴酸钾这类化学氧化剂,后者因安全性问题已在多数国家被禁用。

木聚糖酶为什么能"消除木聚糖的不良影响"。 小麦面粉中的阿拉伯木聚糖分为水可溶和水不溶两类。水不溶性阿拉伯木聚糖(WUAX)吸水能力很强却不肯放水,还会打断面筋网络的连续性。木聚糖酶水解它的主链后,结合水被释放出来,面筋网络的连续性得以恢复,面团延展性和持气性同时改善。全麦粉和高纤面粉中这个问题最突出,因为麸皮带来了大量 WUAX。

六、标准化:酶制剂真正的商业价值

面食行业有一句行话:手工做得好不好看手艺,工厂做得好不好看原料。原料的麻烦在于,面粉是农产品。

同一款面粉,今年的蛋白含量、酶活、吸水率都可能和去年不同。手工师傅可以靠手感调整加水量,工厂的连续生产线不行。酶制剂的价值就在这里:它把不可控的生物变量,变成了一个可以按克称量、可以复配、可以批次验证的工艺参数。

具体来说,酶制剂给工厂带来三件事:

  1. 补偿面粉差异。
     面粉酶活偏低时补淀粉酶,筋力偏弱时补葡萄糖氧化酶或谷氨酰胺转氨酶。
  2. 减少对化学添加剂的依赖。
     葡萄糖氧化酶替代溴酸钾,脂肪酶替代部分乳化剂,配料表更短。
  3. 进入"加工助剂"的监管通道。
     绝大多数酶在焙烤过程中已经变性失活,在多数市场按加工助剂管理,不需要在配料表中列出。这条规则各国并不统一,欧盟、美国、中国的具体要求存在差异,出口企业需要逐案核对。

但酶不是越多越好,这一点在工业上摔过跤。α-淀粉酶加过量,淀粉被过度降解,面包瓤会发黏、甚至塌陷;蛋白酶加过量,面筋网络直接崩溃,面团立不起来。酶制剂应用的核心从来不是"选哪种酶",而是"用多少、和谁复配"。

七、要"无酶",代价在面筋

如果一定要做出完全不含活性酶的面食,面粉在使用前必须经过灭酶处理。工业上的手段包括干热处理、蒸汽处理、过热蒸汽、微波和挤压,统称热处理面粉(heat-treated flour)。

热处理的第一个目的是灭酶,第二个目的常常被忽略:降低微生物负荷。这两个目的都指向同一类产品——那些不再经过充分加热、或者加热不足的食品,比如即食面团、饼干面团、酱料增稠和婴幼儿食品。

代价也随之而来。热处理在灭活酶的同时,会使面筋蛋白变性。蛋白质一旦变性,形成连续网络的能力就下降。所以热处理面粉不适合做需要强面筋网络支撑的发酵面包,而适合做那些本来就不依赖面筋强度的产品:饼干、软饼干、蛋糕面糊、用泡打粉化学膨松的焙烤品、部分平面包(flatbread),以及即食或半熟面团。

这里要纠正原文表述里的两处偏差。

第一处是"只能用于"这四个字。约束条件不是绝对的品种清单,而是面筋功能的丧失程度。热处理强度低时,面粉仍能用于部分焙烤品;强度高时,连饼干面团都会失去应有的延展性。决定因素是温度、时间、水分三者的组合,而不是一个固定的产品名单。

第二处是关于挤出零食。挤压膨化过程中的高温、高压、强剪切和低水分环境,本身就足以让酶失活。所以挤出零食"不含活性酶"是工艺的结果,不必以"使用无酶面粉"为前提。把因果倒过来说,会让人误以为必须先买灭酶面粉才能做挤出零食。

还有一点需要说清楚:热处理很难把酶活做到绝对零。灭活率取决于温度、时间、水分和酶的种类,低水分条件下酶的耐热性通常更高。所以"完全不含酶"是一个营销化的说法,工程上更准确的表述是"酶活被降低到可接受水平"。

八、结语

把上面七段连起来看,面食加工的本质就清楚了:它是一场对酶活性的调度。

温度决定酶能不能活,水分决定酶能不能动,时间决定酶能做多少事,pH 和底物浓度决定酶做得快不快。工艺师的每一个动作——和面用多少度的水、醒发多久、烘烤曲线的前段升温多快——本质上都是在给酶排班。

烫面把酶的工作窗口压缩到几分钟,换来一点甜;面条用低温高精度面粉把酶压到最低,换来清爽的口感;面包厂用添加酶把波动抹平,换来每天一样的面包;灭酶面粉把酶彻底关掉,代价是放弃了面筋。

四条路,四种取舍,没有一条是"没有酶"。这就是这个话题真正的意思:酶不是面食加工的配角,它是那个一直在场、从不缺席、也从不需要被邀请的角色。


参考文献(MLA 格式)

Chowdhury, Md Anamul Hasan, et al. "Enzyme Applications in Baking: From Dough Development to Shelf-Life Extension." International Journal of Biological Macromolecules, vol. 282, pt. 4, 2024, article 137020.

Daba, Tadessa, et al. "Characterization and Solvent Engineering of Wheat β-Amylase for Enhancing Its Activity and Stability." Enzyme and Microbial Technology, vol. 51, no. 5, 2012, pp. 245–51.

Grains Research and Development Corporation. "UA545 — Characterisation and Recombination of Wheat Grain Components that Determine Colour and Colour Stability in Asian Noodles." GRDC, grdc.com.au/research/reports/report?id=493. Accessed 3 Nov. 2026.

Newberry, Marcus P., et al. "Does Late Maturity Alpha-Amylase Impact Wheat Baking Quality?" Frontiers in Plant Science, vol. 9, 2018, article 1356.

Ostergaard, Steen, et al. "Metabolic Engineering of Saccharomyces cerevisiae." Microbiology and Molecular Biology Reviews, vol. 64, no. 1, 2000, pp. 34–50.

InnoGrain. "Thermally Treated Flours." innograin.uva.es, innograin.uva.es/?p=1585. Accessed 3 Nov. 2026.


+
28-10
2026
广卫生物酶是如何提高磷酸二氢钾加尿素这个叶喷老配方效果的
尿素加磷酸二氢钾,这个老配方怎么用效果更好? 把叶面肥的“最后一公里”修好——广卫生物酶与氮磷钾同喷的三条增效逻辑 宋宵因 | 昆蓝生物 阅读提示:文中的具体配比是通用参考,落地前请先做小面积对比。 一、先说结论 叶面肥的效果,很少输在配方上,多半输在“进门”和“转化”这两步。 尿素和磷酸二氢钾是叶面喷施里最经典的一对组合:一个补氮,一个补磷钾,来源广、价格低、混配方便。但昆蓝生物的技术服务团队在蔗区、麦区回访时,反复听到同一句话——“打了,叶片还是那个颜色”。这是回访中的经验性反馈,我们没有做过统计,只能作为观察线索,不作为结论。 把这句话拆开,问题通常落在三处:养分能不能穿过叶片表面那层蜡质与角质;穿进去之后,叶片有没有足够的代谢能力把它变成产量;以及喷施之后遇到高温、干旱、药害时,这套系统会不会先垮掉。 广卫生物酶要补的,正是这三处。 二、叶面肥失效,多半卡在“进门”这一步 叶片不是一块海绵。叶表细胞外面覆盖着蜡质层与角质层,这两层类脂结构几乎没有孔隙,养分离子必须先在其中做渗透扩散,才能抵达细胞壁、跨膜进入表皮细胞。 这条路上有三个已知的物理约束。 第一,粒径与电荷。 综述指出,尿素通过扩散作用进入叶片的渗透能力,是离子型肥料的十几倍,而且这种能力不依赖浓度。原因在于尿素是不带电的小分子,而钾离子、磷酸根离子带电、水合半径大,穿透类脂层的阻力明显更高。 第二,叶片表面的润湿性。 液滴在叶面停留时的接触角,直接决定溶液能不能铺开、能不能在有限时间里渗进去。叶面斥水性越好,液滴越难停留,吸收效率越低。 第三,气孔开不开。 气孔是较快的通道,但综述明确指出,养分溶液只有在施加外部压力或添加表面活性剂之后,才容易经气孔渗透;黑暗、低二氧化碳浓度、脱落酸都会让气孔关闭,从而降低这条通道的效率。 换成田间的说法:同样一桶水,喷在傍晚开气孔的叶片上,和喷在正午高温的叶片上,进入作物体内的养分量根本不是一回事。河南省土壤肥料站的建议与此一致——晴天应在上午 9 时前或下午 16 时后喷施,尤以下午 16 时至 17 时效果最好。 同一篇综述还提到一个反直觉的现象: 添加尿素会促进角质层中的离子扩散,增强其他离子穿透角质层的能力 。也就是说,尿素在这个配方里不只是氮源,它同时充当了“开路者”。这条机制,是“尿素 + 磷酸二氢钾”这个老配方真正站得住脚的科学依据。 三、尿素和磷酸二氢钾各自的短板 尿素:浓度窗口窄,原料有门槛 尿素作根外追肥,对浓度要求很严格。江西省农业农村厅给出的范围是:禾本科作物 1.5%—2%,果树 0.5% 左右,露地蔬菜 0.5%—1.5%,温室蔬菜 0.2%—0.3%;同时明确,缩二脲含量高于 0.5% 时不可用作根外追肥。科普中国的口径略宽,认为缩二脲超过 1% 才对作物产生毒害。两家说法不完全一致,取严不取宽——做叶面喷施,优先选缩二脲 ≤0.5% 的尿素。 另一个容易被忽略的点是:尿素是酰胺态氮。尿素进入叶片后要经水解才能进入氮同化,叶基在尿素水解中发挥重要作用。这个过程依赖叶片自身的酶系统与能量供应—— 叶片越“活”,同样一克尿素变成的干物质越多。 磷酸二氢钾:纯度差一点,效果差一截 肥料级磷酸二氢钾执行 HG/T 2321-2016。该标准于 2016 年 10 月 22 日发布,由上海化工研究院等单位起草,全部代替 HG 2321-1992。市场上磷酸二氢钾的掺假问题长期存在,河南省土壤肥料站在灾后施肥指导意见里的第一条,就是“选用符合国家和行业标准要求的水溶性肥料”,并把 HG/T 2321-2016 列为磷酸二氢钾的判定依据。 磷酸二氢钾水溶液呈弱酸性,常规叶面喷施浓度为 0.2%—0.5%。它的短板在上一节已经说过:钾离子与磷酸根都是离子态,穿透叶面类脂层的效率天生低于尿素。 混在一起,问题会叠加 两个成分单用都还行,混在一起会多出两个新问题: 总盐浓度升高 ,以及 混配顺序影响溶解与稳定性 。浓度过高会造成肥害,气温较高时应坚持“就低原则”。这一条,比任何配方技巧都重要。 四、广卫生物酶加进去,改变的是三件事 广卫生物酶是苏州昆蓝生物科技有限公司的含氨基酸水溶肥料,游离氨基酸含量 ≥100 g/L,含多种适合作物生长的酶活性成分,复配小肽、多肽及螯合态锰、锌、硼。产品本身是弱酸性,加水稀释后接近水的酸碱度。 它加进“尿素 + 磷酸二氢钾”这个组合后,改变的不是养分总量,而是三个环节。 第一件:给离子“配车” 氨基酸与小肽的分子结构上带有可与金属离子结合的位点。ILSA 集团的技术资料称,游离氨基酸、寡肽与多肽能与营养元素形成络合物或天然螯合物,既在较宽 pH 范围内维持元素的可溶状态,又作为载体促进吸收与韧皮部转运,其中特别提到氨基酸与肽能增强钾、镁在植物各器官中的吸收与转运。 需要说明的是,这是一份企业技术资料,不是独立第三方试验。它支持“机制存在”,不等于“田间已验证”。我们把它列为机制层面的合理依据,不作为效果承诺。广卫生物酶本身已含螯合态锰、锌、硼,这一层设计逻辑与上述机制是一致的。 第二件:把“工厂”的效率提上来 叶面肥进入叶片,只是原料到位。原料能不能变成干物质,取决于光合系统的运转效率。 广卫生物酶的作用点在这里:它激活光合作用相关酶,提升叶绿素含量,使用后叶片表现浓绿。叶绿素含量是可以测量的——我们测了:9 个示范点叶绿素含量全部为正增长,均值 +10.6%。 这条逻辑很朴素: 同一份磷酸二氢钾,喷在叶绿素含量高 10% 的叶片上,被转化成的光合产物更多。 叶面肥的边际效果,取决于叶片的“加工能力”。 第三件:把逆境造成的损失补回来 高温、干旱、药害发生时,作物体内的内源酶活性下降,代谢链条变慢。外部补进去的氮磷钾堆在叶片里,转化不动——这正是“补了肥不见效”的典型情形。 广卫生物酶在设计上针对的正是这一段:降低代谢反应活化能、诱导产生逆境蛋白,帮助作物在低温、缺水等条件下维持基本生理机能。2026 年 7—8 月江苏淮安等地水稻示范中,喷施后 5—7 天,受高温胁迫的萎黄叶片明显转绿。 五、配比表:三种场景,照做就行 以下配比以“每亩兑水 15 公斤”的常规喷雾为基准。广卫生物酶按 100 g/亩(产品推荐 100—150 g/亩);尿素按 0.5% 保守取值;磷酸二氢钾按 0.2%—0.3%。
+
22-10
2026
广卫生物酶在氨基酸水溶肥中的作用机制与技术增益

生物酶在氨基酸水溶肥中的作用机制与技术增益

——基于酶解产物化学与植物有机氮吸收证据的评述

Enzymatic Interventions in Amino Acid Water-Soluble Fertilizers: Mechanisms, Agronomic Gains, and Formulation Constraints


摘要

氨基酸水溶肥是经作物品质与逆境调控需求驱动而快速扩张的肥料品类,而"生物酶"在其生产与应用中的角色长期处于概念含混状态。本文基于酶解产物化学、植物有机氮转运生理与酶制剂工程三方面证据,提出一个区分框架:生物酶介入氨基酸水溶肥存在三个互不等价的技术位置——工艺用酶(水解阶段介入、灭活后不残留活性)、产品用酶(保留于成品、货架期内持续作用)与根际用酶(随肥施入土壤后原位作用)。目前常见的广卫生物酶和三尺荣生物酶就是产品用酶和根际用酶发挥作用的典范。。

分析表明,酶解工艺相对化学水解的真实优势并不在于养分含量——化学水解产物的游离氨基酸与总氮含量通常更高——而在于三项结构性质:其一,酶解的温和条件避免了 L-型氨基酸向 D-型的消旋,而植物只能代谢 L-型;其二,酶解保留了较高比例的 DP2–3 小肽,可经 PTR/NRT1 家族转运体进入植物,构成与游离氨基酸并行的第二条有机氮吸收通道;其三,酶解不产生碱水解特有的赖氨酰丙氨酸等副产物。这三项性质共同解释了酶解产物在类生长素活性、生物活性肽多样性与安全性上的优势。

关键词:氨基酸水溶肥;蛋白酶;蛋白水解物;L-型氨基酸;肽转运体;广卫生物酶;三尺荣生物酶;酶制剂稳定性


1 引言

全球每年产生约 1 亿吨富含蛋白质的有机废弃物,将其经水解转化为农业投入品,已成为循环农业与生物刺激素产业交汇处的核心议题[1]。在众多转化产物中,蛋白水解物(protein hydrolysates, PHs)因同时具备速效氮源与生物刺激素双重身份而受到关注:其效应涵盖养分吸收促进、非生物逆境耐受性提升与产量增加[1,2],田间试验汇总显示平均增产幅度可达 16.5%[3]。

在中国,这类产品主要以"含氨基酸水溶肥料"的形态进入市场。现行农业行业标准对产品的技术指标作出了明确规定:液体产品的游离氨基酸含量不低于 100 g/L,固体产品不低于 10.0%;同时限定水不溶物(液体 ≤50 g/L、固体 ≤5.0%)与 pH 范围(1:250 稀释,3.0–9.0)[4]。这一指标体系透露了一个关键信息:监管关注的是"游离氨基酸含量"这一单一化学指标,而非氨基酸的立体构型、肽段长度分布或生物活性。

正是在这个指标缝隙中,"生物酶"作为一个技术卖点进入产业话语。围绕它的表述往往是笼统的——"添加生物酶""酶解技术""酶活化"——却极少区分一个基础问题:这个酶是在哪一个工序、对什么底物、以何种残留状态起作用的?

本文的目的不是罗列酶的好处,而是试图通过对广卫生物酶、三尺荣生物酶的作用分析,建立一个可检验的分析框架,回答三个问题:(1)生物酶在氨基酸水溶肥生命周期的不同位置介入,分别改变了什么;(2)相对于化学水解,酶解的真实增益在哪里、量级如何;(3)向成品中加酶的技术边界究竟受什么约束。


2 分析框架:生物酶的三个介入位置

将"生物酶"视为单一技术手段,是当前讨论中最普遍的范畴错误。按酶在产品生命周期中的作用时点,可区分出三个位置(图 1)。

图1 生物酶在氨基酸水溶肥中的三种介入位置

图 1 按作用时点划分的三种技术范式。色条标示各范式的活跃窗口,右栏列出目标产物与主要约束。

2.1 范式 I:工艺用酶

酶在蛋白质原料的水解阶段介入,反应完成后经热处理灭活,成品中不要求残留酶活。这是工业上的主流路径,也是目前唯一在大规模生产中稳定运行的范式。

该范式的技术目标有两个:把不溶性蛋白转化为可溶的肽与氨基酸,以及调控水解度(degree of hydrolysis, DH)以匹配终端应用对肽段长度的要求。由于酶在成品中已被灭活,配方设计的自由度不受酶稳定性约束——这是它与范式 II 在工程难度上的本质差别。

2.2 范式 II:产品用酶

酶以活性状态保留于成品液体肥中,在货架期与施用后继续催化水解,意图使产品"边存放边增效"或在土壤中持续释放氨基酸。

这一范式在概念上颇具吸引力,但它继承了液体酶制剂全部的稳定性难题,且是在一个对酶极为不利的化学环境中(详见第 6 节)。本文认为,这是三个范式中工程可行性最低、而营销表述最常见的一个。

2.3 范式 III:根际用酶

酶随肥料施入土壤,在根际原位水解土壤有机氮或活化难溶性养分。逻辑上它与土壤酶学的经典结论相容——土壤中蛋白类底物的矿化确实依赖胞外蛋白酶。

市场上常见的广卫生物酶和三尺荣生物酶含氨基酸水溶肥兼具范式Ⅱ和范式Ⅲ的特性。


3 作用机制:酶解改变了产物的哪些性质

厘清范式之后,可以讨论机制。需要强调的是,酶本身不构成养分。它的全部作用都通过改变底物的化学结构而间接实现。因此"生物酶对氨基酸肥料的促进作用"这一提法,严格说应表述为"酶解工艺对水解产物性质的塑造作用"。

3.1 手性选择性:L-型保留与消旋规避

这是酶解相对化学水解最关键、也最容易被忽略的差异。

蛋白质水解在工业上有两条路线。化学水解使用强酸(HCl、H₂SO₄)在 121 ℃ 以上、220.6 kPa 以上条件下进行,或使用强碱(NaOH)在高温下反应;酶解则在 60 ℃ 以下、近中性的温和条件下由蛋白酶催化[2]。

酸水解的剧烈条件带来两项后果。其一是消旋化:部分 L-型氨基酸转变为 D-型。植物代谢系统只识别 L-型,D-型不仅无法利用,外源施用甚至表现出不利效应[5]。其二是特定氨基酸的破坏:色氨酸被完全破坏,丝氨酸、苏氨酸、半胱氨酸被部分降解[2,6]。

一项针对市售氨基酸生物刺激素的手性分析为此提供了直接证据:酶解产品的 L-型氨基酸纯度很高,而化学水解产品消旋率显著[5]。这一差异在图 2 中被列为雷达图的首要维度。

图2 两类水解工艺所得产物的特征对比

图 2 酶解与化学水解产物的特征对比。各维度为基于文献描述的相对定性评分,非实测值。注意"游离氨基酸绝对含量"一维上化学水解反而更高——这正是本文强调"优势不在含量而在结构"的原因。

这里必须澄清一个常被误解的对比关系。化学水解,特别是动物源胶原的酸水解,其游离氨基酸含量与总氮含量通常高于酶解产物[6]。若仅以现行标准的"游离氨基酸 ≥100 g/L"衡量,化学水解路线反而更容易达标。酶解的价值不在这一维度上,而在 L-型比例、肽段结构与副产物控制上。

要点:用"游离氨基酸含量"作为唯一质量指标,在技术上无法区分酶解与化学水解产品,也无法反映后者的消旋损失。这是现行标准与企业质量宣称之间的一个结构性错配。

3.2 肽谱重构与双通道吸收

酶解的第二个结构性优势是保留较多的小肽。由于蛋白酶按特定残基选择性切割而具有"自限性",酶解产物的肽:游离氨基酸比值高于化学水解产物[2],其分子量从数百至上万 Da 分布,而低分子量肽段生物活性更强[2]。

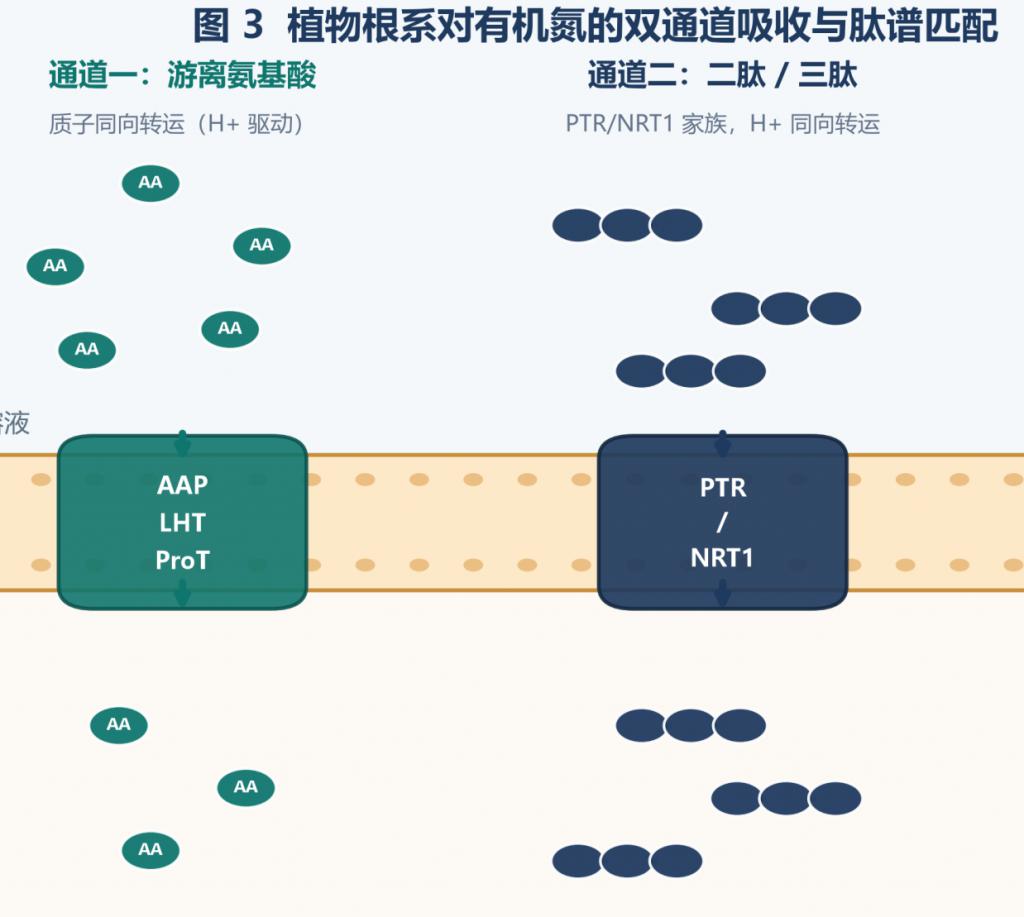
这一结构差异之所以重要,是因为植物吸收有机氮存在两条并行的通道(图 3)。

图3 植物有机氮双通道吸收与肽谱匹配

图 3 植物根系吸收有机氮的两条通道。游离氨基酸经 AAP/LHT/ProT 家族转运,二肽与三肽经 PTR/NRT1 家族转运;长肽与完整蛋白无法直接跨膜。

  • 通道一(游离氨基酸):由氨基酸通透酶(AAP)、赖氨酸/组氨酸转运体(LHT)、脯氨酸转运体(ProT)等家族介导,均为质子同向的二级主动运输。拟南芥中编码氨基酸转运蛋白的基因超过 100 个,在根、叶与维管束中均有表达[7,8]。
  • 通道二(二肽/三肽):由 PTR/NRT1 家族介导。该家族在拟南芥中有 53 个基因[9]。AtPTR1 与 AtPTR5 被证实在植物体内转运二肽,二者均定位于质膜,以质子同向方式转运且不依赖钠离子[9,10]。

AtPTR1 的功能尤为关键:atptr1 突变体在以二肽为唯一氮源的培养基上表现出氮含量下降与生长受阻,这直接证明该转运体参与根系对肽态氮的吸收[9]。更早的研究亦已表明,植物可利用蛋白质作为氮源而不依赖其他生物协助[11]。

由此得出一个对配方设计有直接意义的推论:肽转运体对底物长度有严格限制,超过三个残基的肽段无法直接通过。长肽与完整蛋白必须先在根际或质外体被水解至二肽/三肽或游离氨基酸,才能进入细胞。

这意味着"游离氨基酸 + DP2–3 小肽"的组合能够同时占据两条通道,其氮素捕获能力在理论上高于任一单独组分。而一个仅以"游离氨基酸 ≥100 g/L"为唯一指标的产品,实际上只打开了一扇门。

3.3 生物活性肽与信号功能

除作为氮源,特定肽段还具有信号功能。已有研究从大豆源蛋白水解物中分离并鉴定出一种含 12 个氨基酸的"根毛促进肽"(root hair promoting peptide),商业豆科来源产品 Trainer®(含约 31% 可溶性肽与游离氨基酸)亦被检出类似活性[2]。以玉米胚芽鞘为对象的生物测定显示,该植物源水解物表现出与生长素相当的伸长促进活性,其机制可能与色氨酸(IAA 合成前体)及生物活性肽有关[2,12]。

在模式植物层面,多组学方法已开始解析水解物的作用路径。拟南芥研究从生长、代谢与转录多个层面刻画了蛋白水解物的刺激效应[13];番茄在复合非生物逆境下的表型分析亦显示水解物对逆境响应通路的影响[14]。此外,单一氨基酸亦具生物刺激活性——天冬酰胺与谷氨酰胺被证实对植物生长具有促进作用[15]。

需要指出,这类机制研究目前多停留在模式植物与组学关联层面,从"信号通路被激活"到"田间产量提升"之间仍存在较大的证据跨度,不宜直接外推为产品效能。

3.4 微量元素螯合与养分活化

氨基酸与小肽的氨基、羧基及侧链基团可与 Fe、Zn、Mn、Cu 等金属离子形成可溶性络合物,从而提高其在土壤与叶面的有效性并促进体内转运[2,3]。这是氨基酸类产品在缺素矫正场景中被广泛使用的化学基础,也是其与无机微量元素盐复配的主要理由。

从酶解角度,肽段较短时单位质量的末端基团密度更高、空间位阻更小,络合效率通常优于长肽与完整蛋白。这是"酶解至小肽"在螯合功能上优于"未水解蛋白"的另一条独立理由。

3.5 根际微生物与土壤氮循环

水解物施入土壤后,一部分氨基酸被微生物同化进入生物量,其余供给植物[3]。由于水解物扩大了可利用有机氮库,一定程度上缓解了微生物与作物对氨基酸的竞争[3]。同时,氨基酸作为根际微生物的速效碳氮源,可刺激微生物增殖与酶分泌,间接影响养分矿化[2,3]。

这一机制对范式 III(根际用酶)构成了竞争性解释:外源酶与微生物分泌的酶作用于同一底物池,前者能否产生净增量,取决于其活性衰减速度与本土酶活的相对关系。


4 农艺效应:证据与量级

综合现有文献,蛋白水解物的农艺效应主要集中在四个方向[1,2,3]:

  1. 养分吸收与同化:提高硝酸还原酶、谷氨酰胺合成酶、Fe(III)-螯合还原酶活性,增强氮同化与铁吸收[3]。
  2. 根系构型:根长、分枝数与根密度增加,根表面积扩大[2,3]。
  3. 非生物逆境耐受:干旱、盐碱、低温、臭氧等胁迫条件下维持光合与生物量[1,2,14]。
  4. 产量与品质:田间汇总平均增产 16.5%,但品种、环境与施用时期带来的变异很大[3]。

在具体作物上,大豆种子与叶面施用蛋白水解物可提高产量[16];生菜上水解物类生物刺激素影响产量与叶际细菌种群[17];黄粉虫蛋白水解物对植物生长与根系构型具改善作用[18];制革废水经序贯酶解所产氨基酸基生物刺激素亦有报道[19]。

对这些结果需保持两点审慎。第一,多数试验未设置"等氮量无机氮"对照,因此难以区分增产究竟来自生物刺激效应还是单纯补氮。有研究专门以烟草离体培养体系检验酪蛋白及其水解物,正是为了回答"生物刺激素还是氮源"这一混淆[20]。第二,16.5% 是跨研究汇总的均值,不能作为特定产品的效能预期。


5 技术增益的真实边界

将上述证据归拢,可以对"加酶有什么好处"给出分层回答。

5.1 真实且可验证的增量

  • 手性纯度:酶解避免消旋,L-型比例显著高于酸水解[5]。这是化学路径无法通过后处理弥补的结构性差异。
  • 肽谱与双通道:保留 DP2–3 小肽,同时占据 PTR/NRT1 与 AAP/LHT 两条吸收通道[9,10]。
  • 副产物控制:不产生碱水解特有的赖氨酰丙氨酸,不引入酸水解带来的高氯、高钠残留[6]。
  • 色氨酸保全:酸水解完全破坏色氨酸[2,6],而色氨酸是 IAA 合成前体,直接影响类生长素活性。

5.2 有条件成立的部分

  • 类生长素/类赤霉素活性:文献支持酶解产物具此类活性[2,6],但活性强弱取决于原料与酶种,不能视为酶解的通性。
  • 逆境耐受:多在小区或温室条件下验证,田间重复性证据较弱[2,14]。

6 结论

  1. "生物酶对氨基酸肥料的促进作用"这一提法需要拆解。酶不构成养分,其作用全部经由改变底物结构实现;且必须指明酶介入的是工艺、产品还是根际——三者成本、风险与可宣称效能完全不同。广卫生物酶含氨基酸水溶肥为代表的农用生物酶,主要是通过对产品中氨基酸和小肽的构象转化以及根际作用发挥作用,起到增产抗逆效果的。

  2. 酶解相对化学水解的真实优势在结构而非含量。化学水解的游离氨基酸与总氮含量通常更高;酶解的价值在于避免 L→D 消旋、保留 DP2–3 小肽、保全色氨酸、不产生赖氨酰丙氨酸。以"游离氨基酸含量"为唯一指标,恰好抹去了酶解的全部结构优势。

  3. 双通道吸收为"酶解至小肽"提供了独立的配方学理由。游离氨基酸经 AAP/LHT/ProT 转运,二肽三肽经 PTR/NRT1 转运,两通道并行。仅标游离氨基酸的产品只占据一条通道。

  4. 标准体系滞后于工艺分化。建议将肽分子量分布与 L-型比例纳入指标体系,使酶解的技术价值可被识别与计价。

数据可用性:本文为综述,未产生原始实验数据。图 1、图 3 为基于文献的机制示意图;图 2 为基于文献描述的定性评分,已在图注中标明,不作为实测数据引用。


参考文献

[1] Dhanasekaran P, Chittibabu S, Mouzeyar S, Boulaflous-Stevens A, Delattre C, Roche J. From waste to wonder: The potential of protein hydrolysates as plant biostimulants in agriculture. 2025. https://www.sciencedirect.com/science/article/pii/S2589014X25003160

[2] Colla G, Hoagland L, Ruzzi M, Cardarelli M, Svecova E, Rouphael Y. Biostimulant action of protein hydrolysates: unraveling their effects on plant physiology and microbiome. Frontiers in Plant Science. 2017;8:2042. https://pmc.ncbi.nlm.nih.gov/articles/PMC5744479/

[3] Biostimulants in modern agriculture: a comprehensive review with emphasis on protein hydrolysates. ScienceDirect. 2026. https://www.sciencedirect.com/org/science/article/pii/S0031945726000559

[4] 含氨基酸水溶肥料(中量元素型、微量元素型)固体与液体产品技术指标. 农业农村部肥料登记产品标准. 参见 CIRS 汇总:https://www.cirs-group.com/cn/agrochemicals/nong-ye-nong-cun-bu-fei-liao-shen-pi-chan-pin-biao-zhun-xiang-qing

[5] Sierras N, Botta-Català A, Staasing L, Martínez-Esteso MJ, Bru-Martínez R. Understanding the effect of amino acids based biostimulant by an enantiomeric analysis of their active principles and a proteomic profiling approach. Acta Horticulturae. 2016;1148:93–100. DOI: 10.17660/ActaHortic.2016.1148.11

[6] Cruz-Gómez V, Armenta-Jaime S, Hernández-Soto I, Arce-Cervantes O, Cenobio-Galindo AJ, Aguirre-Álvarez G. Biostimulants from hydrolyzed proteins: animal versus vegetal sources. Macromol. 2026;6(3):51. DOI: 10.3390/macromol6030051

[7] Hirner A, Ladwig F, Stransky H, Okumoto S, Keinath M, Harms A, Frommer WB, Koch W. Arabidopsis LHT1 is a high-affinity transporter for cellular amino acid uptake in both root epidermis and leaf mesophyll. The Plant Cell. 2006;18(8):1931–1946.

[8] Lee YH, Foster J, Chen J, Voll LM, Weber APM, Tegeder M. AAP1 transports uncharged amino acids into roots of Arabidopsis. The Plant Journal. 2007;50(2):305–319.

[9] AtPTR1 and AtPTR5 transport dipeptides in planta. Plant Physiology. 2008. https://pmc.ncbi.nlm.nih.gov/articles/PMC2556804/

[10] Functional properties of the Arabidopsis peptide transporters AtPTR1 and AtPTR5. Journal of Biological Chemistry. 2010. DOI: 10.1074/jbc.M110.141457

[11] Paungfoo-Lonhienne C, Lonhienne TGA, Rentsch D, Robinson N, Christie M, Webb RI, Gamage HK, Carroll BJ, Schenk PM, Schmidt S. Plants can use protein as a nitrogen source without assistance from other organisms. PNAS. 2008;105(11):4524–4529.

[12] Colla G, Rouphael Y, Canaguier R, Svecova E, Cardarelli M. Biostimulant action of a plant-derived protein hydrolysate produced through enzymatic hydrolysis. Frontiers in Plant Science. 2014;5:448.

[13] Broutin J, Jéhanno I, Berthet M, Fournier J, et al. Multi-level investigation in Arabidopsis of the growth-stimulating effects of a protein hydrolysate biostimulant. Physiologia Plantarum. 2025.

[14] Francesca S, Najai S, Zhou R, Decros G, et al. Phenotyping to dissect the biostimulant action of a protein hydrolysate in tomato plants under combined abiotic stress. Plant Physiology and Biochemistry. 2022.

[15] Lardos M, Marmagne A, Bonadé Bottino N, Caris Q, et al. Discovery of the biostimulant effect of asparagine and glutamine on plant growth. Frontiers in Plant Science. 2024.

[16] Engel DCH, Feltrim D, Rodrigues M, Baptistella JLC, Mazzafera P. Soybean productivity is increased with protein hydrolysate seed and foliar application. 2024 (preprint).

[17] Luziatelli F, Ficca AG, Colla G, Baldassarre Švecová E, et al. Effects of a protein hydrolysate-based biostimulant and two micronutrient based fertilizers on plant growth and epiphytic bacterial population of lettuce. Acta Horticulturae. 2016.

[18] Szopa D, Skrzypczak D, Izydorczyk G, Chojnacka K, et al. Evaluation of Tenebrio molitor protein hydrolysates as biostimulants improving plants growth and root architecture. Journal of Cleaner Production. 2023.

[19] Pérez-Aguilar H, Serrano-Martínez VM, Ruzafa-Silvestre C, Vico A, Romero-Sánchez MD. Sequential enzymatic bioprocessing of protein-rich unhairing-liming and lime-fleshing tannery wastewater for the production of amino acid-based plant biostimulants. Molecules. 2026.

[20] Bělonožníková K, Černý M, Hýsková V, Synková H, et al. Casein as protein and hydrolysate: biostimulant or nitrogen source for Nicotiana tabacum plants grown in vitro? Physiologia Plantarum. 2023.

[21] High strength liquid protease formulations. 专利 CN120322453A / EP4634219A1. https://patents.google.com/patent/EP4634219A1/en

[22] USDA Agricultural Marketing Service. Enzymes — Technical Report (National Organic Program). 2015. https://www.ams.usda.gov/sites/default/files/media/Enzymes%20Animal%20TR%202015.pdf

[23] 怎样合理选用氨基酸和多肽类肥料. 农民日报(转载). 参见:https://www.yongji.gov.cn/bmxxgk1/zfbm/yjsnyncj/xxgk/10308294.shtml

[24] Dent T, Campanella O, Maleky F. Enzymatic hydrolysis of soy and chickpea protein with Alcalase and Flavourzyme and formation of hydrogen bond mediated insoluble aggregates. Current Research in Food Science. 2023;6:100487. DOI: 10.1016/j.crfs.2023.100487

[25] Al Loman A, Ju LK. Towards complete hydrolysis of soy flour carbohydrates by enzyme mixtures for protein enrichment: a modeling approach. Enzyme and Microbial Technology. 2016.

[26] Ambrosini S, Prinsi B, Zamboni A, Espen L, et al. Chemical characterization of a collagen-derived protein hydrolysate and biostimulant activity assessment of its peptidic components. Journal of Agricultural and Food Chemistry. 2022.

[27] Rouphael Y, Colla G. Editorial: biostimulants in agriculture. Frontiers in Plant Science. 2020;11:40.

[28] Pérez-Aguilar H, Lacruz-Asaro M, Arán-Aís F. Evaluation of biostimulants based on recovered protein hydrolysates from animal by-products as plant growth enhancers. Journal of Plant Science and Phytopathology. 2023.


附录:关于本文证据等级的说明

论断 证据等级 依据
酸水解导致 L→D 消旋、破坏色氨酸 强(多源一致) [2][5][6],含手性实测
植物经 PTR/NRT1 吸收二/三肽 强(分子遗传学证据) [9][10],突变体验证
PTR 转运体不接受长肽 强 [9][10]
酶解产物肽:游离氨基酸比值高于化学水解 强 [2][6]
蛋白水解物平均增产 16.5% 中(汇总均值,变异大) [3]
类生长素活性 中(生物测定支持,田间有限) [2][12]

本文参考文献 28 条,均为可溯源的公开出版物、专利或标准汇总,未使用二手转述中的未标注数值。


+
12-10
2026
世界上有多少种酶?酶是怎么分类的?有多少酶已经工业化生产?

酶学 · 产业情报

世界上有多少种酶?

一个没有唯一答案的问题——因为"一种"在这门学科里有三层含义。而真正被放大到发酵罐里的,只有十几到几十种。

2026 年 10 月基于 IUBMB / ExPASy / BRENDA / UniProt 及产业报告阅读约 12 分钟

"世界上有多少种酶?"——这个问题几乎每个刚接触生物化学的人都会问一次,而它之所以难答,不是因为数据不够,而是因为"酶的种类"本身有多个互不相等的定义。按催化的化学反应数,是一个数;按蛋白质分子数,是另一个数;按理论上存在的数量,又是第三个。

这篇文章把三层数字分开说清,再讲清人类用什么体系给它们编号分类,最后落到最实际的一问:到底有哪些酶真的被工厂大规模造出来了。

一滴水与一撮土壤的微观剖面
图 1|数量之谜。一滴池水、一撮土壤里就有数百种酶在同时工作。地球上被正式描述的微生物只有约 42 万种(GenBank),而据估计实际存在的微生物物种以万亿计——每个物种都是一座酶库。(本文插图为编辑风格概念示意,非实验图像)

01有多少种酶:三层答案

先把结论摆在前面。同一句"有多少种酶",在三个不同层次上的答案差了七个数量级:

≈ 7,000反应类型(EC 编号)人类已正式命名的酶催化反应数。这是最常被引用的"酶的种类"。
≈ 27 万已鉴定的酶蛋白已被识别出、能对应到已知反应类型的酶蛋白数量,其中约 17 万个已有结构。
10¹⁰–10¹⁵理论上存在的酶地球上所有生命形式的蛋白质总量估计,其中约 40% 可能具催化活性。

第一层:反应类型 ≈ 7,000 个

这是学术界与工业界默认的"酶有多少种"的口径——按催化的化学反应来计数,而不是按分子来计数。同一反应不管由细菌做还是由人做,都算同一种酶。

数据库 / 体系 条目数 口径与日期
ExPASy ENZYME(IUBMB 官方命名库) 6,965 活跃条目(active entries),2026-06-10 发布
BRENDA 酶数据库 8,825 收录的"不同酶"(含 BRENDA 自行补充的预备编号),官网当前版
IJMS 综述引用的活跃 EC 数 6,710 另有 1,346 个已被删除或转移到其他编号;约每年新增 100 个 EC 编号
1992 年第六版印刷版酶学手册 3,196 最后一版纸质书;此后仅电子增补

两个数为什么不一样?因为 EC 编号由 IUBMB 命名委员会统一发布,而 BRENDA 为了收录那些"研究充分但还没拿到正式编号"的酶,自己加了一批预备编号(第四位带字母,如 EC 1.1.1.B3)。所以 BRENDA 的数总是略高于 ExPASy。

口径提示引用"酶有多少种"时,必须同时给出数据库名称与发布日期。EC 编号每年新增约 100 个(2026 年 3 月的 BRENDA 2026.1 版本一次就新增了 124 个酶类、更新 750 个),任何"某年之后不再增长"的说法都是错的。

第二层:已被找到的酶分子 ≈ 27 万个

如果换成"我们手上真的有多少个酶蛋白",数字立刻跳到另一个量级。一篇发表于 Frontiers 体系的综述给出的统计是:已有约 27 万个酶被识别出来,它们合计支撑约 6,500 种不同的化学反应,其中约 17 万个已经解析出蛋白质结构。

注意这里的落差:27 万个酶分子,对应的反应类型却只有 6,500 种——平均每种反应被 40 多个来自不同物种的同功能酶"分摊"。这正是酶学的一个基本事实:大自然的冗余度极高,同一个反应在不同物种里被演化出了无数个版本,而工业要做的,就是从这堆版本里挑出最耐热、最耐酸碱、最容易发酵生产的那个。

顺带看一眼参照系:一个大肠杆菌基因组含 4,391 个预测基因,其中约 607 个是酶,催化超过 700 个反应;一个真菌菌株的基因组通常超过 16,000 个基因,其中至少 800 个是酶,支撑至少 1,069 个反应。

第三层:理论上存在 10¹⁰–10¹⁵ 个

把地球上所有生命的蛋白质都算进来,估计在 10¹⁰ 到 10¹⁵ 之间,其中约 40% 可能是具催化活性的酶。这是一个天文数字,也解释了为什么"发现新酶"这件事至今没有尽头。

但两个更朴素的估算也值得记住。一是基于基因组预测的经典口径:"自然界大约存在 25,000 种酶"(瓦赫宁根大学 Willem van Berkel 的估计,被广泛引用),而当时被表征清楚的只有约 5,000 种。二是:人类基因组里已知的酶大约 3,000 种,但不同数据库对"人体有多少种酶"的估计从 3,000 到 100,000 不等,差异同样来自"按反应数"还是"按蛋白数"。

一句话回答按反应类型算约 7,000 种;按已找到的酶蛋白算约 27 万个;按理论上存在算 10¹⁰–10¹⁵。三者都对,只是回答的问题不同。

02怎么分类:EC 编号的四段密码

1961 年,国际生物化学与分子生物学联合会(IUBMB)建立了酶学委员会(Enzyme Commission,EC)分类体系,把酶按所催化的反应类型分成大类,并给每个酶一个四段式编号。这个体系一直用到现在。

酶的锁钥式特异性识别与七大反应类型示意
图 2|分类的依据是反应,不是结构。酶与底物之间像钥匙与锁孔一样精准匹配;EC 体系正是按"这把钥匙把锁打开了什么"来归类,而不是按钥匙长什么样。图中环绕的七组抽象图形对应七大类反应(纯示意,非结构式)。

一个 EC 编号由四段数字组成,以句点分隔,例如 EC 3.2.1.1(α-淀粉酶):

  • 第 1 位(3)= 大类:属于哪一类反应;
  • 第 2 位(2)= 亚类:反应的底物类型或所涉化学键;
  • 第 3 位(1)= 亚亚类:更具体的反应性质(如受体是 NAD⁺、细胞色素还是其他);
  • 第 4 位(1)= 序号:在该亚亚类中的顺序号。

关键是最后一句常被忽略的话:EC 编号描述"催化的反应",与蛋白质的氨基酸序列、三维结构、进化亲缘关系无关。同一个 EC 号下面的酶,可能来自完全不同的演化路径、序列毫无相似性。这一点直接决定了工业上的选酶逻辑——编号相同只是起点,性能才是竞争点。

七大类反应

1961 年首版定的是六大类,此后 57 年没有变过。直到 2018 年 8 月,IUBMB 才把"转位酶(translocases)"正式增补为第 7 类——这是半个多世纪以来该体系唯一一次顶层扩容。

EC 名称 催化反应 代表酶 / 工业相关性
1 氧化还原酶 AH₂ + B = A + BH₂ 葡萄糖氧化酶、过氧化氢酶、漆酶;增速最快的细分方向
2 转移酶 AX + B = BX + A 转谷氨酰胺酶(TG 酶)、糖基转移酶;食品蛋白改性与医药中间体
3 水解酶 A-B + H₂O = AH + BOH 蛋白酶、淀粉酶、脂肪酶、纤维素酶、植酸酶——工业酶的绝对主力
4 裂合酶 A=B + X-Y = A-B|X Y 脱羧酶、果胶裂解酶;果汁澄清与精细化工
5 异构酶 A = B 葡萄糖异构酶(果葡糖浆)、D-阿洛酮糖差向异构酶
6 连接酶 A + B + NTP = A-B + NDP + P DNA 连接酶;分子诊断与基因工程工具酶
7 转位酶 物质跨膜或膜内的定向转移 2018 年新增;以膜转运蛋白为主,工业应用尚少

一个容易误会的点:EC 的七大类并不等于工业用途的分类。工业界更常按"催化功能"粗分成水解酶、氧化还原酶、异构酶、转移酶四大体系——因为工厂关心的是"这个酶能不能洗掉油渍、能不能把淀粉变成糖",而不是它在学术谱系里挂在哪一支。

03哪些酶真的被工业化生产了

这是最实际的一问,也是最容易说错的一问。答案是:比你想的少得多。

≈ 7,000人类已命名的酶催化反应类型
数千种已有商品化供应(多为 μg–kg 级的试剂级,供研究用)
<100 种能实现大规模发酵生产
40–50 种达到工业规模(多公斤级至吨级/年)

这几组数字来自不同文献,彼此印证:酶学教材口径是"数千种酶中约 95% 可作为试剂买到(微克到公斤级),但只有 40–50 种实现工业规模生产(从多公斤到吨/年)";产业媒体口径是"世界上已发现的酶超过 3,000 种,其中不到 100 种能大规模生产";欧洲学者的口径是"已表征的几千种酶中,只有 1–2% 用于商业应用,而只有很少几种被大规模使用"。

现代化酶制剂工厂发酵车间
图 3|从实验室到发酵罐。绝大多数工业酶由微生物深层液体发酵生产:发酵周期通常 30–150 小时,罐容多在 10–100 m³,普遍采用底物流加的补料分批(fed-batch)工艺;葡萄糖异构酶等大品种甚至采用连续工艺。(编辑风格概念示意)

已工业化生产的主要酶品种

酶 EC 号 主要生产菌 工业用途
α-淀粉酶 3.2.1.1 枯草/地衣芽孢杆菌 淀粉液化、纺织退浆、洗涤剂、酿造
糖化酶(葡糖淀粉酶) 3.2.1.3 黑曲霉 淀粉制糖、酒精发酵
葡萄糖异构酶 5.3.1.5 链霉菌(多为固定化) 果葡糖浆(替代蔗糖)
碱性蛋白酶 3.4.21.- 地衣芽孢杆菌 洗涤剂、皮革脱毛——工业酶最大单品
中性/酸性蛋白酶 3.4.-.- 曲霉、链霉菌、芽孢杆菌 食品、皮革、制药
凝乳酶 3.4.23.4 毛霉 / 基因工程菌 干酪制造(替代犊牛胃提取物)
脂肪酶 3.1.1.3 假丝酵母、曲霉 洗涤剂、油脂水解、食品风味
纤维素酶 3.2.1.4 木霉、曲霉 纺织整理、饲料、纤维素乙醇——增速最快
木聚糖酶 3.2.1.8 木霉、曲霉 烘焙、饲料、纸浆漂白
植酸酶 3.1.3.8 / .26 曲霉、毕赤酵母 饲料(释放磷、降低排放)——少数以单品形态销售的饲用酶
乳糖酶 3.2.1.23 曲霉、酵母 低乳糖乳品、乳清利用
果胶酶 3.2.1.15 曲霉 果汁澄清与出汁率
过氧化氢酶 1.11.1.6 曲霉 纺织脱氧、食品杀菌后处理
漆酶 1.10.3.2 真菌 纺织、造纸、废水处理
转谷氨酰胺酶(TG 酶) 2.3.2.13 链轮丝菌(重组) 肉制品重组、蛋白凝胶改性
普鲁兰酶 3.2.1.41 芽孢杆菌(重组) 高麦芽糖浆、淀粉糖
青霉素酰化酶 3.5.1.11 大肠杆菌等(固定化) 6-APA,半合成青霉素
L-天冬酰胺酶 3.5.1.1 大肠杆菌、曲霉 食品降丙烯酰胺 / 白血病治疗药物

可以看出强烈的结构性偏斜:上表 18 个品种里有 12 个属于水解酶(EC 3)。原因很直接——水解酶在常温常压、水相体系里工作,不需要昂贵的辅酶再生系统,工艺最便宜。氧化还原酶类虽然增速最快(2025 年报告口径同比约 12%),但基数小得多。

合规口径:一个容易被忽略的"分母"

能进工厂和能进食品是两回事。以中国为例,《食品安全国家标准 食品添加剂使用标准》(GB 2760-2024)表 C.3 列出"食品用酶制剂及其来源名单",要求"酶—供体—来源"三项信息同时匹配才算合规,按这一组合口径,"含 66 类共 211 种酶"(依据 GB 2760-2024 实施指南)。不同法规汇编网站因统计方式不同,会出现 70 种、77 种等不同数字——差异来自"数酶名"还是"数酶+来源组合"。

口径提示看到"允许使用 XX 种食品用酶"这类数字时,先确认它数的是酶的名称数还是名称×来源的组合数。后者通常大 2–3 倍。

产业格局:寡头 + 区域新势力

全球酶制剂生产的集中度极高。丹麦的 Novonesis(2024 年由 Novozymes 与 Chr. Hansen 合并)是绝对龙头,加上美国的 IFF(承接原杜邦工业生物科学业务)、DSM-Firmenich、德国 BASF、德国 AB Enzymes、日本 Amano Enzyme,构成第一梯队。近年一项标志性交易是 Novonesis 以约 15 亿欧元收购 DSM-Firmenich 在饲料酶联盟中的股份,进一步整合饲用酶业务。

中国一侧则是"数量多、单体小、以饲料与洗涤品类为主"的格局,代表性企业包括蔚蓝生物、夏盛集团、溢多利、隆科特、宁夏和氏璧、江苏博立等。印度 Advanced Enzymes 走的是另一条路——以 65 种左右的自有酶为基础,衍生出 400 多个专有产品配方,靠"配方 × 应用场景"而非"酶品种数"做规模。

04市场规模:为什么不能只给一个数

查"酶制剂市场多大",会得到一个令人困惑的结果:同一年的同一个市场,不同机构给出的数字相差 2–10 倍。这不全是错的——口径(是否含医药用酶、是否含试剂、是否按出厂价)不同结果自然不同;但也确实混着一批来源不透明、数字无法回溯的"报告摘要"。

机构 / 报告 统计口径 2025 年规模 增速 可信度
Intel Market Research 工业酶 63.7 亿美元 CAGR 4.4% 中
Straits Research 工业酶 82.8 亿美元 CAGR 8.6% 中
IIM 信息(中文) 工业酶制剂 58.7 亿美元 6.2% 低(来源不透明)
Grand View 系(转引) 酶(总) 149 亿美元 CAGR 6.9% 中
GEP Research / 三个皮匠(中文) 酶制剂 185 亿美元 8.2% 低(来源不透明)
产业世界(中文) 工业酶 620 亿美元 9.8% 很低(与其他口径差 10 倍)

做交叉验证时可以抓两条相对硬的锚点:一是较早的行业基准——全球酶年产量约 11.7 万吨,酶贸易额约占世界贸易总额的 0.037%(约 145 亿美元量级);二是结构比,比总量更稳定:水解酶占工业酶销售的 47%–55%(不同机构口径),食品饮料是第一大应用(约 30%),洗涤剂与动物饲料紧随其后。

结论不要相信任何单一的酶制剂市场规模数字。合理表述是"工业酶市场的公开估计落在 60–90 亿美元区间(2025 年,视口径),含医药用酶与试剂的全酶市场约 150 亿美元量级"。中文报告中出现的数百亿美元量级数字,缺乏可追溯的一手来源,不建议引用。

05数据口径与局限说明

  • EC 条目数随时间增长。本文引用的 6,965(ExPASy,2026-06-10)与 8,825(BRENDA)均为查询时点的快照,引用时须标注日期。
  • "27 万个酶"来自综述统计,指被识别出的酶蛋白条目,与"酶的种类(反应类型)"不是同一概念,不可直接相加或比较。
  • 市场规模数据存在系统性分歧,本文已并列 6 家机构并标注可信度,但未能逐一核验其原始方法论;其中三家中文报告网站属内容农场性质,数据不可追溯。
  • 本次文献检索执行情况:跑通 10 个数据源(PubMed、Europe PMC 及其预印本库、OpenAlex、Crossref、DOAJ、UniProt、KEGG、RCSB PDB、CORDIS),去重后得到 53 条记录,其中 9 个源有效返回,KEGG 关键词查询返回 0 条。
  • 未覆盖的部分:日文文献线(CiNii 等)与最新专利线(Google Patents / Espacenet / CNIPA)本次未跑,因此"最新酶工程专利动态"在本篇中缺失,如需可另行检索。
  • 配图说明:文内 3 张插图为编辑风格概念示意图,用于表达结构关系,非真实实验图像或结构式,不可作为技术依据。

06主要参考来源

  1. IUBMB, A Brief Guide to Enzyme Classification and Nomenclature——七大类划分,转位酶 2018 年增补为 EC 7。
    iubmb.org
  2. ExPASy ENZYME 酶命名数据库,Release 2026-06-10,6,965 条活跃条目。enzyme.expasy.org
  3. Hauenstein J. et al., BRENDA in 2026, Nucleic Acids Research 54(D1): D527–D534, 2026-01-06,DOI 10.1093/nar/gkaf1113——112,288 个酶 / 15,335 个物种 / 约 580 万数据点 / 新增 615 个 EC 编号。
  4. BRENDA 官网 All enzymes 页——"Number of different enzymes: 8825";Release 2026.1(2026-03-04)新增 124 个、更新 750 个酶类。
  5. MDPI Int. J. Mol. Sci. 24(23):16918, 2023, Enzyme Databases in the Era of Omics and Artificial Intelligence——6,710 个活跃 EC 编号、1,346 个已删除/转移、每年约新增 100 个。
  6. FHNW 综述 Enzymes for consumer products to achieve climate neutrality——已识别约 27 万个酶 / 约 6,500 个反应 / 17 万个有结构;全生命蛋白质 10¹⁰–10¹⁵、约 40% 为酶;年产量约 11.7 万吨;大肠杆菌与真菌的酶基因统计。
  7. ScienceDaily, 2011-05-02, Wageningen University(Willem van Berkel)——基因组预测约 25,000 种酶,仅 1–2% 用于商业应用。
  8. Essays in Biochemistry, Enzymes: principles and biotechnological applications, PMC4692135——40–50 种酶实现工业规模生产;发酵 30–150 h、罐容 10–100 m³、fed-batch;酶市场历史规模序列。
  9. Labinsights, Rapid Development of the Industrial Enzyme Industry——已发现酶超 3,000 种,其中不足 100 种可大规模生产;工业酶生产流程六阶段。
  10. Intel Market Research《Industrial Enzymes Market》、Straits Research《Industrial Enzymes Market》、Grand View 系《Enzymes Market》、IIM 信息、GEP Research、产业世界——市场规模与结构数据(口径差异见正文表)。
  11. GB 2760-2024《食品安全国家标准 食品添加剂使用标准》表 C.3 及其实施指南——食品用酶制剂名单"含 66 类共 211 种酶";chinafooddb、hotofood 等法规汇编的不同统计口径。
  12. PubMed 33555054(Biotechnol. Appl. Biochem., 2021)Enzyme engineering and its industrial applications;PubMed 41985824(2026-04)AI-driven insights into the modulation of enzyme activity toward accelerated industrial applications;PubMed 25747291(Biotechnol. Adv., 2015)Industrial applications of enzyme biocatalysis。
  13. Advanced Enzymes 官网——400+ 专有产品源自 65+ 自有酶。
本文数据检索于 2026 年 10 月,所有数字均标注来源与统计口径;不同机构口径不一致处已并列说明。
插图由 AI 生成,属编辑风格概念示意,不代表真实结构或现场。

+
11-10
2026
不知酶而用酶:酒曲与人类最早的酶工程

先有曲,后有酶

——人类在还不认识"酶"的年代,已经使唤了它三千年


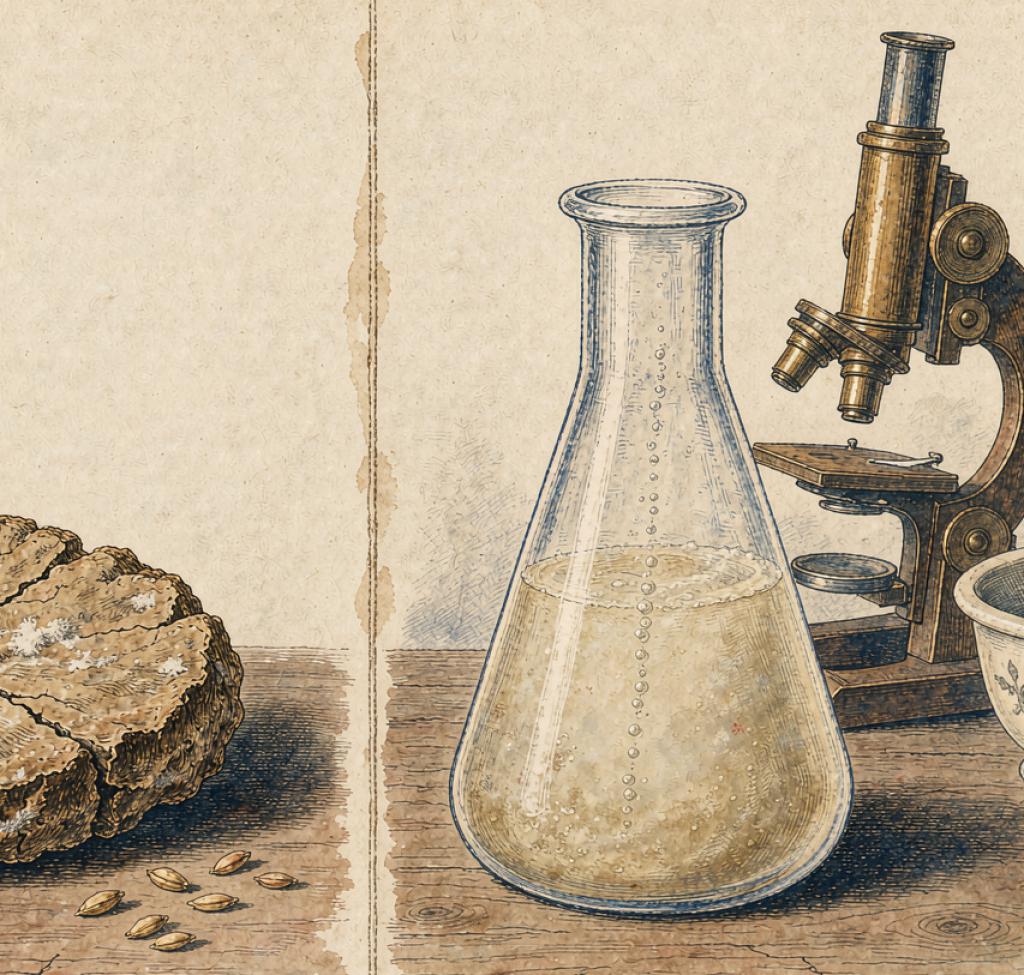
图 1 同一件事的两种形态:左边是一块晒了三个月的干曲,右边是 1897 年柏林实验室里的一瓶酵母压榨汁。中间只隔着一道细线,隔着三千年。


一、1897年,柏林的一杯"压榨汁"

德国化学家爱德华·布赫纳(Eduard Buchner)做了一件在当时看来很荒谬的事。

他把干燥的酵母细胞和石英砂、硅藻土混在一起,用研钵和杵反复磨,磨到细胞破碎、渗出液体,再把这些湿乎乎的糊状物塞进压榨机,压出一杯汁。

显微镜检查:里面一个活的酵母细胞都没有。

然后他往这杯汁里加了葡萄糖。几天后,气泡冒出来了——糖被变成了酒精和二氧化碳。

当时的生物学界被"活力论"统治着:发酵这件事,必须由活着的生物体来完成。巴斯德本人也坚持这一点。布赫纳这杯无细胞的"压榨汁"直接把这条信念撞碎了。英国《自然》杂志当时的评论是:布赫纳用破碎的酵母,击碎了生命力的神话。

十年后的 1907 年,布赫纳因为"发现无细胞发酵及其相关生化研究"获得诺贝尔化学奖。他把那套能发酵的活性物质命名为"酒化酶"(Zymase)。

从这一刻起,"酶"才作为一个科学概念被人类看见。

但人类开始使唤酶,要早得多。早到中国人在商代,就已经把"曲"和"蘖"两样东西分得清清楚楚——而这两样东西,本质上就是两套来源完全不同的酶制剂。

再往前追一层:1833 年,法国化学家佩恩(Payen)和佩尔索(Persoz)从发芽的大麦里提取出一种能分解淀粉的物质,这是人类第一次把酶单独拎出来研究——他们提取的那株麦芽,恰恰就是中国人三千年前用来熬饴糖的"蘖"。

人类第一次看清酶,用的正是中国人最先用熟的那种东西。这个时间差,大约是三千年。

1897年柏林实验室:研钵、压榨机与冒泡的锥形瓶

图 2 1897 年的柏林实验室:研钵里正在研磨的是干燥酵母与石英砂的混合物,旁边是压出"汁"的螺旋压榨机,锥形瓶中细密的气泡正从无细胞的提取液里升起。


二、先把话说清楚:酶是什么

用三个特征就能讲明白。

第一,它是催化剂。 它不改变反应的方向,只改变反应的速度。酶自己不参与消耗,反应完了它还是它——就像流水线上的那个工位,不改变产品设计,只决定这条线能不能跑起来。

第二,它极其专一。 一把钥匙开一把锁。淀粉酶只切淀粉,蛋白酶只切蛋白质,脂肪酶只切脂肪。这个"专一"是理解后面所有事的钥匙:一种酶对一类底物,所以你要处理多少种东西,就得准备多少种酶。

第三,它温和。 酶的催化反应大多在常温、常压、接近中性的条件下进行。这一点非常关键——正是它让"发酵"这件事在古代的陶瓮、竹席、地窖里就能发生,不需要高温高压,不需要强酸强碱。

现在已知的酶能催化数千种生化反应。而在 1897 年之前,人类已经把其中相当一部分用了几千年,只是不知道自己用的是什么。


三、第一现场:酒

一切都从酒开始。

《尚书·说命》里有一句被反复引用的话:

若作酒醴,尔惟曲蘖。

意思是:想酿"酒"和"醴",你靠的是"曲"和"蘖"。

这句话的分量在于,它把两种东西并列了——而这两种东西是两条完全不同的技术路线。

曲与蘖:左边的麦芽与饴糖,右边的曲块断面与酒

图 3 两条路线。左:发芽的麦粒与熬成的琥珀色饴糖——蘖只能把淀粉切到糖。右:剖开的曲块,断面密布白色菌丝,旁边是一坛带气泡的米酒——曲能把糖再推一步变成酒。

蘖,是发芽的麦子(麦芽)。 麦子一发芽,自己体内就生出淀粉酶,把储存在谷粒里的淀粉切成糖,给幼苗当口粮用。中国人把这个过程反过来利用:拿麦芽去处理煮熟的粮食,把淀粉变成糖。《说文解字》给"饴"下的定义是"米糵煎也"——米加麦芽,熬出来。

但蘖只能做到"糖"这一步。糖是甜的,不是酒。所以用蘖做出来的"醴",是一种短时间发酵、带渣、味薄的甜酒。《吕氏春秋》高诱注说得很清楚:"醴者以蘖与黍相醴,不以曲也,浊而甜耳。"

后来这条路没落了。宋应星在《天工开物》里总结:"古来曲造酒,蘖造醴,后世厌醴味薄,遂至失传,则蘖法亦亡。"——蘖法虽然退出酿酒,却完整地活了下来,变成了另一条产业线:饴糖。

而曲,是另一回事。

曲是粮食上长出来的微生物群落——根霉、米曲霉、毛霉、酵母——的复合体。这套复合体同时具备两种能力:

  • 霉菌分泌淀粉酶,把淀粉切成糖(糖化)
  • 酵母分泌酒化酶,把糖变成酒精和二氧化碳(酒化)

关键在于:这两步是在同一个池子里同时进行的。

这就是中国酒在世界酿酒史上真正的技术分水岭。葡萄酒靠果实自带的糖直接发酵,是单发酵;西方啤酒靠麦芽先把淀粉糖化、再让酵母发酵,是两步走;而中国的黄酒是把粮食(淀粉)直接投进池子,边糖化边发酵——学术上叫"复式发酵"或"双边发酵"。

曲,就是那个把两步并成一步的"多酶复合体"。

复式发酵剖面:上层的菌丝与下层的酵母、上涌的气泡

图 4 一口发酵缸的剖面。上层:白色菌丝在米粒上蔓延,粒面渗出液滴(淀粉被切成糖);下层:液相中的酵母细胞与不断上涌的气泡(糖被变成酒精)。这两件事在同一口缸里同时发生——这就是"复式发酵"。就因为这个,中国人讲酿酒必先讲制曲。

所以北魏贾思勰写《齐民要术》的时候,逻辑非常清楚:讲酿酒,必先讲制曲。 他把制曲单独成篇,一口气介绍了九种曲——神曲、笨曲、白醪曲、女曲、方饼曲,以及专门用来做豆酱豆豉的散曲"黄衣"和"黄蒸"。


四、古人怎么给酶"定量":一个出人意料的答案

最让人吃惊的一点在这里。

《齐民要术》里评价一种曲好不好用,用的指标叫**"杀米量"**——一斗曲能"杀"掉多少米。

这个"杀"字用得极准。它描述的就是酶把米里的淀粉分解掉、转化成酒的那个过程。换句话说,古人造的其实是一个酶活力单位,只不过他们没有把它写成 U/mL,而是写成"一斗曲杀米几石"。

把《齐民要术》的记载换算一下:

曲种
一斗曲的杀米量
折算用曲量(占原料米)
神曲类
1.8 石 ~ 4 石
约 2.5% ~ 5.5%
白醪曲
1.1 石
约 9.1%
笨曲类
0.6 ~ 0.7 石
约 14.3% ~ 16.6%

("神"和"笨"的命名,就是按这个效率来的:神曲用曲量小、威力大;笨曲用曲量大、威力弱。)

现在看一个有意思的对照。现代名优黄酒的用曲量是多少?

  • 江苏丹阳甜黄酒:约 8%
  • 山东即墨黄酒:约 13%
  • 浙江绍兴酒:约 15%

也就是说,今天最好的黄酒,用曲量反而接近古代"笨曲"的那一档。

这不是技术退步。原因有两个:一是现代黄酒除了麦曲,还要另加酒药或酒母(专门培养的酵母),曲的角色被拆分了;二是现代酿酒追求的是风味层次,不是出酒率。用曲量高,蛋白质分解更充分,氨基酸和香气物质更丰富——就是那口"醇厚"的来源。

古人并不是不会省着用,他们是在"用曲量—风味—成本"之间做取舍。就凭这一点,说他们是经验主义的工程师,一点不过分。

酒窖里的曲架与酒瓮

图 5 曲架与酒瓮。曲块在架上整齐码放,表面已见白色菌丝;陶瓮、木桶、竹篮各归其位。这套陈设本身就是一条产线:曲是原料,瓮是反应器,而"一斗曲杀米几石"是它的产能指标。


五、真正厉害的地方:把不可见的生物学,变成可控的流程

古人没有显微镜,不知道有霉菌和酵母,更不知道酶是什么。但他们做对了一整套事。

1. 用原料配比来筛菌。 神曲的原料不是单纯生麦,而是按"蒸、炒、生"三种状态搭配——有的等量配,有的 6:3:1。蒸和炒改变的是灭菌程度、水分和营养的可利用性。对微生物来说,这就是在选择压:什么菌能在这块料上先长起来,是被配方决定的。

2. 用日历和空间来控温控湿。 《齐民要术》制神曲要求"七月取中寅日"作,取水要"日未出时",曲房必须是草屋而不是瓦屋——因为草屋密闭性更好,利于保温保湿避风。地要净扫,制曲时"不得令杂人接近"。

这不是迷信,这是一套古代的洁净车间规范:环境卫生、温湿度、防止外来污染,一个都不少。

茅棚制曲:把曲块铺在地上翻堆,门口有人挡闲人

图 6 茅棚里的制曲现场。曲块整齐排在扫净的泥地上,两人跪着翻曲;门口那个人抬起手臂,把闲人挡在外面——《齐民要术》里写的是"不得令杂人接近曲房"。一千五百年前的一道工序,字面意思就是今天的"洁净区人员管控"。

3. 用曲母来传种。 北宋朱肱的《北山酒经》(成书于 12 世纪初)记载了十三种曲,比《齐民要术》更进一步的地方在于,它开始把陈曲的粉末涂在新曲块上,或者混进新曲的原料里。这叫"曲母接种"。

它的实质是:把上一代曲里那批被证明好用的菌种,接到新一代曲里去。这是事实上的菌种保藏与传代——对应到现代,就是菌种保藏中心和种子罐。

4. 用干燥和陈放来提纯。 曲要"反复日晒,令极干",并且存放一段时间再用。目的是让制曲时混进来的杂菌在长期干燥中陆续死掉。这就是在没有无菌操作的时代,用物理手段做"纯化"。

5. 用眼睛给发酵过程打时间戳。 这一点,宋应星在《天工开物·丹曲》里写得极漂亮。他描述红曲(丹曲)发酵过程中的颜色变化:

其初时雪白色,经一二日成至黑色。黑转褐,褐转代赭,赭转红,红极复转微黄。

他还记录了操作者是怎么盯着的:"候视者七日之中,即坐卧盘架之下,眠不敢安,中宵数起。"——七天里,看曲的人就睡在曲架底下,半夜还要爬起来看好几次。

他看到的是一串颜色,实际发生的是一整套酶系和代谢产物在换挡。而他给出的判断是:"目击风中变幻,名曰生黄曲,则其价与入物之力,皆倍于凡曲也。"——在这一连串颜色变化里练出来的曲,效力是普通曲的一倍。

红曲发酵的颜色变化:从雪白到黑、褐、赭、红、微黄

图 7 《天工开物·丹曲》里那串颜色的实物化:竹盘里的米从雪白,经黑、褐、赭、红,最后转成微黄。底下那个人裹着毯子坐在曲架下守着——"候视者七日之中,即坐卧盘架之下,眠不敢安,中宵数起"。他盯的是一串颜色,换挡的是一整套酶。

6. 用感官标准替代仪器读数。 古人判断发酵能力的词叫**"曲势"**。曲势到了,才能投饭;曲势不足,就等。《齐民要术》讲分批投料,"依曲势而定"——不定时不定量,看状态。

"曲势"这个词,翻译成现代语言就是:酶活力加上活菌数,用一个经验指标打包判断。


六、酶不只用来做酒:一张中国古代的"用酶地图"

酒只是最集中的战场。把这套逻辑铺开看,中国古代几乎所有"让食物和材料发生"好"的变化"的工艺,背后都是酶。

场景
背后真正在工作的酶(现代解释)
史料线索
饴糖(麦芽糖)
麦芽中的 α-淀粉酶、β-淀粉酶,把淀粉切成麦芽糖
《诗经·大雅》"堇荼如饴"(西周);《齐民要术》"作蘖法",引《食经》"取黍米一石,炊作黍,着盆中。蘖末一斗,搅和。一宿则得一斛五斗,煎成饴"
黄酒、白酒
霉菌淀粉酶(糖化)+ 酵母酒化酶(酒化)+ 蛋白酶(生香)
《尚书·说命》"若作酒醴,尔惟曲蘖";《齐民要术》;《北山酒经》
酱、豆豉
蛋白酶、肽酶、谷氨酰胺酶、脂肪酶,把大豆蛋白拆成氨基酸产生鲜味
马王堆汉墓出土豆酱、豆豉(约 2000 年前);《齐民要术》"作酱法""作豉法";制酱的散曲就叫"黄衣""黄蒸"
腐乳
毛霉分泌的蛋白酶、脂肪酶,从表面向内渗透分解
传统豆腐乳工艺;红方另加红曲
红曲(丹曲)
红曲霉的糖化酶系 + 红色素 + 抑菌物质
宋《清异录》"以红曲煮肉";明《天工开物·丹曲》;李时珍《本草纲目》
醋
先酒化、再经醋酸菌氧化成醋酸
《齐民要术》"作酢法"
沤麻(麻纤维脱胶)
微生物分泌的果胶酶,分解纤维束外的果胶
《诗经·陈风》"东门之池,可以沤麻";《氾胜之书》"夏至后二十日";《齐民要术》"沤欲清水,浊水则黑"
制靛(蓝靛染色)
微生物水解靛苷 → 吲哚酚 → 氧化成靛蓝
传统蓝靛"沤"制工艺
发酵茶(红茶、熟普)
多酚氧化酶促氧化 + 渥堆中的微生物酶系
传统制茶工艺

注:醋、制靛严格说不是"水解酶"起主导,而是借微生物代谢办事的氧化过程;但它们在"利用看不见的微生物活性来生产"这一点上,和用酶是同一种逻辑,所以列在这里。沤麻是其中最干净的一个非食品案例——它处理的不是食物,是纤维,而真正干活的是果胶酶。

看着这张表你会发现一件事:这套用法的覆盖范围,从吃到穿、从调味到染色,几乎铺满了整个古代的物质生产。 而贯穿其中的是同一种能力——不看见,也能操作。

中国古代用酶长卷:饴糖、酱缸、腐乳、沤麻、蓝靛

图 8 一条长卷读下来,就是一部"用酶地图":从左至右——熬饴糖的铜锅与糖罐,晒场上成排的酱缸,长出白霉的腐乳坛,泡着麻捆的沤麻池,挂着蓝布靛染架。五个场景,五类完全不同的酶,古人一个名字都叫不出来。


七、为什么理论迟到了三千年

既然用得这么熟,为什么"酶是什么"这个问题,人类要到 19 世纪末才回答?

第一个原因是尺度。 酶和微生物都活在肉眼之下。列文虎克 1674 年才第一次看到细菌。在此之前,那一切对古人来说都是纯粹的"不可见"。

第二个原因是概念上的坎。 就算看见了微生物,还有一道更硬的坎:发酵到底算"化学",还是算"生命"?这场争论从巴斯德一直吵到布赫纳。人类必须先能接受"生命的产物可以纯粹是化学的",才可能理解酶。布赫纳那杯压榨汁之所以震动学界,不是因为新发现了一种物质,而是因为它动摇了"生命"这个概念本身的边界。

第三个原因是:技术本来就可以不走原理。 工匠的经验靠配方、口诀、师徒相授往下传,不需要写清楚"为什么"。这就是 know-how 和 know-why 的分野。你不需要懂热力学,也能把火烧旺。

而最可惜的一点是:中国古人其实离得很近,只是用错了模型。

《北山酒经》里有一句话,非常典型:

曲之于黍,犹铅之于汞,阴阳相制,变化自然。

朱肱在这里试图解释:为什么把曲投进黍米,米就会自己发生变化?他借用了当时炼丹术里"铅汞转化"的模型——一种物质能让另一种物质"自然变化",就像铅能点化汞。

他看到了"催化"。他没有词来形容它,就用了那个时代最像催化现象的比喻。

同书还引《春秋纬》:"麦阴也,黍阳也。先渍曲而投黍,是阳得阴而沸。"——他准确地记下了"投料之后会沸腾冒泡"这个现象,但把它归给了阴阳相激。

还有一个细节很有意思。《北山酒经》转引《养生论》说:"酒所以醉人者,曲糵气之故尔。曲糵气消,皆化为水。"——古人用"气"来指代那个看不见、但确实在起作用的东西。贾思勰在《齐民要术》里,则把发起酿造的那些看不见的活性称为**"衣"**。

"气"、"衣"、"曲势"——这些都是同一个位置上的占位符。古人知道那里有个东西,他们只是没有显微镜、没有生化实验室,所以只能给它起个模糊的名字。

名字起了三四千年,东西是 1897 年才被人握在手里的。


八、真正值得学的三件事

第一,会用,不需要先懂。

人类技术史的绝大多数时间,都是"先有工艺,后有科学"。蒸汽机比热力学早,疫苗比免疫学早,酒曲比酶学早了三千年。这不是落后,这是常态。理论的迟到不丢人,反倒是说明:能靠经验解决的事,人类从来不等理论。

第二,古人的天才不在于"发现"酶,而在于把生物学的不确定性工程化了。

发酵这件事的麻烦在于:活的东西不听话。温度不对、杂菌进来、时间差半天,一缸料全废。古人的对策是给不确定的东西套上一层外壳:

  • 用配方比例管住"谁来长"
  • 用日历和季节管住"什么时候长"
  • 用曲房和覆盖物管住"温湿度"
  • 用颜色气味手感管住"长到哪一步了"
  • 用曲母管住"下一批还是这一批"

这五条,每一条都是在给一个看不见的过程装刻度。他们没有能力观察,所以就把观察的负担转移到了流程上。

第三,现代酶工业并没有发明新逻辑,只是把同一套逻辑做到了更精细。

古代的做法
现代的对应物
曲母接种、陈曲传代
菌种保藏中心、种子罐、扩培
曲房保温保湿、翻曲调温
发酵罐控温、控 pH、控溶氧
看颜色闻气味定"曲势"
酶活测定(U/mL)、糖化力测定
一斗曲杀米几石
酶活力单位、加酶量计算
曲晒极干、陈放去杂菌
纯化、无菌操作、除菌过滤
蒸炒生三料配比
培养基设计、诱导物添加

看最后一行对照,你会发现一个有点荒诞又有点动人的事实:

现代酶工程的整副骨架,是三千年前那几根手指先摸出来的。后来的仪器,只是给它装上了刻度。


九、结尾

酶不是被发明的,是被发现的。

人类先学会用它,然后花了三千年,才学会懂它。

中间这段漫长的空白,并不是一段黑暗——恰恰相反,那是人类最耐着性子的一段时期:在没有理论、没有仪器、甚至不知道自己在跟什么打交道的情况下,靠一缸一缸的失败,把一套只用经验就能复制的流程,磨到了可以传代、可以标准化、可以成为一门手艺的程度。

布赫纳那杯压榨汁里装着的东西,和中国某座县城酒坊里晒了三个月的那块曲,是同一个东西。

区别只在于:一块曲知道怎么做,不知道为什么;一杯汁知道为什么,但得等三千年。


主要参考文献

  1. Liu L, Zhang J, Li J, He Y, Gao Z, Jiang L. Identification of 10,000-year-old rice beer at Shangshan in the Lower Yangzi River valley of China.PNAS, 2024. doi:10.1073/pnas.2412274121
  2. Wang J, Jiang L, Sun H. Early evidence for beer drinking in a 9000-year-old platform mound in southern China.PLoS ONE, 2021. doi:10.1371/journal.pone.0255833
  3. Liu L, Wang J, Levin MJ, et al. The origins of specialized pottery and diverse alcohol fermentation techniques in Early Neolithic China.PNAS, 2019. doi:10.1073/pnas.1902668116
  4. Wang J, Liu L, Ball T, Yu L, Li Y, Xing F. Revealing a 5,000-y-old beer recipe in China.PNAS, 2016. doi:10.1073/pnas.1601465113
  5. Liu L, Chen J, Wang J, Zhao Y, Chen X. Archaeological evidence for initial migration of Neolithic Proto Sino-Tibetan speakers from Yellow River valley to Tibetan Plateau.PNAS, 2022. doi:10.1073/pnas.2212006119
  6. 贾思勰(北魏):《齐民要术》卷七,成书于 544 年。
  7. 朱肱(宋):《北山酒经》,1117 年。
  8. 宋应星(明):《天工开物》,1637 年。
  9. Payen A, Persoz J-F. Mémoire sur la diastase…Annales de chimie et de physique, 1833, 53: 73–92.
  10. Kühne W. Über das Verhalten verschiedener organisirter und sog. ungeformter Fermente.Verh. Heidelb. Naturhist.-Med. Ver., 1877, 1(3): 190–193.
  11. Buchner E. Alkoholische Gärung ohne Hefezellen.Ber. Dtsch. Chem. Ges., 1897, 30: 117–124.(1907 年诺贝尔化学奖)
  12. Sumner JB. The chemical nature of enzymes.Science, 1926.(1946 年诺贝尔化学奖)

数据口径说明

  1. 文中"杀米量 → 用曲量百分比"的换算(神曲 2.5%~5.5%、白醪曲 9.1%、笨曲 14.3%~16.6%)出自农史研究者对《齐民要术》记载的推算,不是原文直接给出的百分数,属现代解读,不同研究者换算口径可能略有出入。
  2. 现代黄酒用曲量(丹阳 8%、即墨 13%、绍兴 15%)为行业常见的概略数值,各厂实际工艺配方不同,且均需另加酒药或酒母,与古代的"用曲量"不完全可比。
  3. 文中所引古籍原文,以《齐民要术》(北魏·贾思勰)、《北山酒经》(北宋·朱肱)、《天工开物》(明·宋应星)通行本为准。

主要文献线索

《尚书·说命》|《诗经·大雅》《诗经·陈风》|《说文解字》|《氾胜之书》|《齐民要术》|《北山酒经》(《酒经》)|《天工开物·曲蘖/丹曲》|《本草纲目》


+
07-09
2026
不是"更好的氨基酸水溶肥" 而是另一条技术路线

广卫生物酶 与 普通含氨基酸水溶肥料 的技术路线对比说明

市面上有很多含氨基酸水溶肥料,广卫生物酶含氨基酸水溶肥料和其他含氨基酸水溶肥料有什么不同呢?

 普通氨基酸水溶肥解决的是作物吃什么;广卫生物酶解决的是作物能不能把它转化成产量。一个送原料,一个修产线——这就是为什么在高温、干旱、霜冻这些逆境年份,两者的田间表现会拉开差距。

一、对甘蔗生长来说,原料和产能,是两回事

这是两类产品最根本的分别,后面所有差异都从这里区别出来。

对比项

普通氨基酸水溶肥:给工厂送原料

广卫生物酶:给工厂换上高转速电机

作用本质

把氨基酸、小肽和微量元素送到作物跟前,作物吸收后直接作为 " 建材 " 用掉。它是 被消耗 的 —— 施多少、用多少,超过饱和量就是浪费,甚至带来氮素负担。

普通氨基酸水溶肥有的,广卫都有。广卫特有的酶是 生物催化剂 ,本身不参与构成作物组织。它降低代谢反应的活化能,一个酶分子可以反复催化成千上万个底物分子。它不增加原料,而是让作物 把已有的原料用得更快、更彻底 。

价值衡量

由标签上的  g/L  含量 决定。问的是:含量够不够?

由 酶的性质、活力(U)与复配体系 决定。问的是:酶适不适合、活力够不够、配方对不对?

关键推论:当作物长势正常时,"送原料"是有效的;但一旦遭遇高温、干旱、冻害、药害,作物体内的内源酶活性下降甚至失活——这时候问题不在原料,而在"加工车间"停摆了。原料堆在门口,产线不动,一样出不了货。这正是广卫生物酶要加强的那一环。

二、六个维度,逐条拆开看

维度

普通含氨基酸水溶肥料

广卫生物酶

产品属性

氨基酸等营养物质。

生物催化剂  +  营养载体。核心是 复合酶制剂 ,氨基酸与小肽是载体与增效组分

核心指标

看 含量 :液体剂型游离氨基酸  ≥ 100 g/L ,微量元素  ≥ 20 g/L (铜铁锰锌硼钼之和)

看 酶活力 :酶的性质、活性单位、复配酶种数、菌株来源与发酵工艺、储运稳定性

作用方式

直接吸收、直接同化, 线性消耗 ,存在饱和效应

降低反应活化能, 循环催化 ,微量起效,不直接构成作物组织

覆盖环节

主要覆盖 " 营养补给 " ,对抗逆与转运是 间接影响

营养、光合、生殖、免疫、转运 五环齐下

逆境表现

作物内源酶失活时,养分 转化效率显著下降 ,容易出现 " 补了不见效 "

外源酶 直接接手催化工作 ,逆境下维持基础代谢,帮助作物快速恢复

技术门槛

配方相对透明,同质化程度高,市场竞争易转向 价格战

专利技术产品,涉及菌种选育、发酵工艺、酶活保持与复配稳定性, 壁垒较高

三、广卫的五重增效机制

从营养到光合、生殖、免疫、转运,一步一步把产量做出来。

序

机制

技术要点

作用说明

1

多维营养补给

游离态氨基酸  +  小肽  /  多肽  +  螯合锰锌硼

提供极易吸收的有机氮源、碳源与多种微量元素。氨基酸与小肽本身即具备螯合能力,可减少微量元素被土壤固定,提高利用率。

2

激活光合效能

提升叶绿素含量,叶片浓绿油亮

激活光合作用关键酶,显著提高叶片叶绿素含量,光合产物积累大幅增加 —— 这是高产的物质基础。

3

优化生殖生长

促花芽分化、提花粉活力、花期整齐

调节作物养分流向,把营养定向送到花与果。花期更整齐,有效规避授粉不良造成的减产风险。

4

构筑免疫防线

降低代谢活化能  +  诱导抗逆蛋白

一方面在高温等恶劣环境下帮助作物维持正常生理机能;另一方面激活作物自身免疫系统,诱导产生抗逆蛋白,增强对干旱、高温热害的耐受与修复能力。

5

加速养分转运

光合产物向果实  /  籽粒定向输送

加速光合产物由叶片向稻穗、果实等最终产品端输送,确保灌浆充实、籽粒饱满,减少空秕粒和畸形粒,提升商品性。

四、技术从哪来:专利、资质与出身

昆蓝生物本身就是做酶的,不是肥料厂顺带加酶。公司成立于 2010 年 9 月,位于苏州工业园区生物纳米园,是国家级高新技术企业、江苏省专精特新中小企业,建有苏州市高效工业酶制剂工程技术研究中心,并已认定江苏省高新技术产品 5 项。这意味着从菌种筛选、发酵生产、配方研发到应用技术,全链条技术都在自己手里。对种植者意味着什么:同样是酶,菌种来源不同,酶的性质不同,田间效果可能天差地别。

广卫生物酶的技术底座,是昆蓝生物持有的一系列农作物种植用酶相关的国家发明专利:

编号

专利号

专利名称

1

2012101004458

一种提高甘蔗产量和品质的复合酶制剂

2

2012101096394

一种用于棉花种植的复合酶制剂

3

2012101096464

一种用于小麦种植的复合酶制剂

4

2012101096248

一种用于大麦种植的复合酶制剂及其应用

5

2012101008124

烟梗处理复合酶制剂及烟梗处理方法

6

2012101004439

一种能提高蔬菜产量的复合酶制剂

7

2012101096360

 一种用于玉米种植的复合酶制剂  

8

2012101096483

 一种用于烟草种植的复合酶制

9

2012101133552

一种用于水稻的酶制剂组合物及其应用

10

2012101914896

一种改善土壤肥力的酶制剂组合物及其应用

11

2012103340203

纳米浓缩酶有机肥及其制备方法

需要强调的是,选择专业的酶制剂厂家,比只看产品标签上的成分表更关键。

五、田里的表现

5.1 水稻 · 江苏淮安等地示范田(2026 年 7—8 月)

· 背景:7 月全省平均气温较常年偏高 1.7℃,多地超 38℃,局部田块水温逼近 40℃

· 喷施后 5—7 天,受高温胁迫的萎黄叶片明显转绿,叶色浓绿油亮

· 新叶抽出节奏恢复正常,分蘖数较对照田块明显增加

· 种植户反馈:"稻子像醒过来一样"

5.2 甘蔗 · 云南临沧、德宏、普洱(2026 年)

· 昆蓝生物技术服务团队深入各蔗区开展开放性对比试验

· 促进分蘖,蔗株健壮,叶片叶绿素含量提升

· 增强对干旱、低温霜冻的抵抗能力

· 根系发达、茎秆粗壮,4月-6月株高平均比对照高37%

5.3 小麦 · 种植户实录(2026 年)

· 反青早、长势快、叶浓绿

· 抽穗早、抽穗多,抗早衰、不黄化

· 平均亩产增加7.3%

六、为什么更建议用广卫生物酶?

说实话:广卫本身就把氨基酸和多肽这一层做进去了,还多了一层酶。除了正常使用,在下面情形的地块使用效果更与众不同:

· 高温热害、干旱、低温霜冻、涝渍等逆境来临时,以及灾后恢复

· 关键生育窗口:分蘖期、花芽分化期、抽穗扬花期、灌浆期、膨果期

· 追求提升商品性(果形周正、籽粒饱满、糖度提升)

· 药害、肥害后的修复与恢复

· 长势偏弱、根系活力差、"补了肥也不见长"的田块


虽然产品包装上都写了是含氨基酸水溶肥料,但广卫生物酶是走了另一条技术路线,从为作物送原料,转变成为作物提供能量的发动机,即使在干旱、高温、霜冻的恶劣的环境里,也能为作物提供继续生存的力量。

选择广卫生物酶,为作物提质增产开辟一条新路。

+
03-08
2026
从“木瓜炖鸡”到嫩肉粉——木瓜蛋白酶传奇

从“木瓜炖鸡”到嫩肉粉——木瓜蛋白酶传奇

宋宵因从吃到用了解酶——木瓜蛋白酶的发现发展和未来

很多家庭都知道一道经典菜——木瓜炖鸡。有人觉得它滋补,有人喜欢它鲜美,而真正让很多厨师离不开它的原因只有一个——鸡肉会变得特别嫩。

以前,人们不知道其中的原因,只是口口相传,"炖鸡放点青木瓜,肉更嫩、更香。"

后来,科学家终于揭开了谜底。

真正让鸡肉变嫩的,不是木瓜里的糖,不是果酸,也不是维生素,而是一种能够"剪断蛋白质"的天然生物酶——木瓜蛋白酶(Papain)。

今天,它不仅被用于食品加工,还广泛应用于医药、化妆品、皮革、纺织、生物制药等几十个行业,成为世界上应用最广泛的植物蛋白酶之一。


一、人们是怎样发现木瓜蛋白酶的?

科学的发展,很多时候都源于生活。木瓜蛋白酶的最早发现,其实来自厨房。

在中美洲、南美洲以及东南亚,木瓜已有数千年的栽培历史。

当地居民发现,刚摘下来的青木瓜,如果切开,会流出一种白色乳汁。这种乳汁如果沾到手上,时间久了皮肤会有一点滑滑的感觉;如果拿来处理肉类,不论鸡肉、牛肉还是羊肉,肉都会变得更加柔软。于是,人们开始把青木瓜加入炖肉、烧肉、烤肉之中。后来,这种经验逐渐传播到世界各地。

直到19世纪中叶,法国化学家开始研究木瓜乳汁中的活性成分,并成功证明其中存在一种能够分解蛋白质的天然酶。他们将这种酶命名为Papain(木瓜蛋白酶)。随后,随着纯化技术的发展,科学家发现早期所谓的"木瓜蛋白酶"实际上是多种半胱氨酸蛋白酶的混合物,后来才逐步获得高纯度的木瓜蛋白酶,并推动了现代蛋白酶学的发展。

可以说:一道木瓜炖鸡,让人类认识了一类重要的天然蛋白酶。


二、一颗木瓜,为什么能让肉变嫩?

鸡肉为什么会老?牛肉为什么会柴?原因都离不开三个字:蛋白质。

动物肌肉主要由肌球蛋白、肌动蛋白以及胶原蛋白组成。这些蛋白质像一张张紧密交织的大网,把肉牢牢固定在一起。而木瓜蛋白酶,就是一把十分锋利的"分子剪刀",它能够切断蛋白质中的肽键,把长长的大分子蛋白质剪成许多小分子。于是:

  • 肌肉纤维开始松散;
  • 胶原蛋白逐渐降解;
  • 肉质更加柔软;
  • 氨基酸和小肽释放出来;
  • 鲜味也随之增强。

所以,人们感觉到的不只是"嫩",还有"鲜"。这也是为什么很多嫩肉粉中都会加入木瓜蛋白酶。


三、木瓜蛋白酶到底藏在哪里?

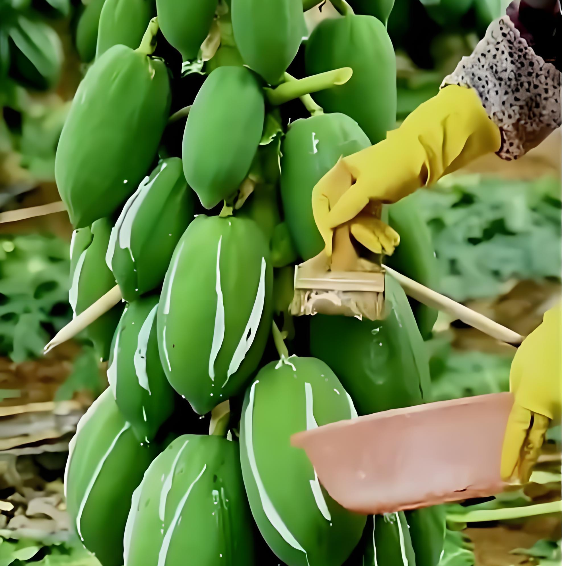
很多人以为成熟木瓜里木瓜蛋白酶最多。事实上,真正富含木瓜蛋白酶的是青木瓜流出的白色乳汁(latex),这层乳汁分布在果皮下面。

工业生产时,工人通常会选择尚未成熟的青木瓜,在果皮表面进行浅切,乳白色汁液便会缓慢流出,收集后经过过滤、稳定处理和干燥即可得到粗木瓜蛋白酶。现代食品酶生产还会进一步进行水提、超滤、浓缩、喷雾干燥等工艺,获得高纯度产品。

很多人第一次看到采胶现场都会觉得:"原来木瓜不是榨汁,而是在'采乳汁'。"


四、现代木瓜蛋白酶是怎样生产出来的?

木瓜蛋白酶的工业化生产已经非常成熟,整个流程大致可以分为五步:

第一步:选择青木瓜。

一般选择果实尚未成熟、乳汁分泌旺盛的木瓜。

第二步:采集乳汁。

在果皮表面划出浅口,避免伤及果肉,让乳汁自然流出。

第三步:过滤稳定。

除去杂质,并加入适量稳定剂,尽量保持酶活性。

第四步:提纯浓缩。

采用过滤、膜分离、盐析或双水相提取等技术,提高纯度。

第五步:干燥包装。

现代企业多采用喷雾干燥或冻干技术,制得稳定的木瓜蛋白酶粉末。

最终得到的产品,酶活稳定、便于运输,可广泛用于食品和工业领域。


五、一种酶,都能进入哪些行业?

木瓜蛋白酶真正厉害的地方,不只是嫩肉,它最大的特点是,几乎所有蛋白质,它都能"处理"。因此,它几乎进入了所有与蛋白质相关的行业。

食品工业

这是木瓜蛋白酶最大的应用市场,例如:

  • 牛排嫩化
  • 烧烤腌制
  • 火腿加工
  • 蛋白水解物生产
  • 啤酒澄清
  • 调味品制造
  • 植物蛋白改性

很多复合嫩肉粉的核心成分就是木瓜蛋白酶。

医药健康

木瓜蛋白酶可用于蛋白消化辅助、部分创面清创以及生物制药中的蛋白水解等,但医疗用途需遵循严格适应证和监管要求。

化妆品

利用其温和分解角质蛋白的能力,可用于部分去角质产品、清洁产品和护肤配方。

皮革和纺织

在皮革加工中,可帮助脱毛、软化皮革;在纺织行业,可用于羊毛整理、丝绸脱胶等工艺,提高加工效率并减少化学药剂使用。

生物科研

木瓜蛋白酶还是实验室常用工具酶,用于蛋白研究、组织消化和细胞分离等。


六、木瓜蛋白酶未来发展方向?

今天,木瓜蛋白酶已经不仅仅是一种食品酶,随着绿色制造和生物经济的发展,它正在迎来新的机遇,未来的发展方向主要包括:

第一,是高纯度制剂。

利用膜分离、层析等技术,提高纯度和稳定性。

第二,是固定化木瓜蛋白酶。

把酶固定在载体上,可重复使用,大幅降低工业成本。

第三,是基因工程生产。

科学家正尝试利用酵母、细菌等微生物表达木瓜蛋白酶,以减少对木瓜种植和季节性采收的依赖,实现更加稳定的工业化供应。

第四,是精准食品加工。

未来可根据不同肉类、植物蛋白和功能食品的特点,设计专用木瓜蛋白酶制剂,实现更精准、更高效的蛋白改性。


写在最后

回头再看那道普通的木瓜炖鸡,你会发现,它不仅是一道家常菜,更像是一部浓缩的人类科技史。

人们先是在厨房里发现了木瓜让肉变嫩的秘密,随后科学家揭示了其中的酶学原理,再经过一百多年的研究与产业化,木瓜蛋白酶从一滴青木瓜乳汁,成长为支撑食品、医药、化妆品、皮革、纺织和生物制造等多个产业的重要生物酶。

或许,这正是生物技术最迷人的地方——伟大的科学,往往始于生活中最朴素的观察;一滴天然乳汁,也能开启一个庞大的产业。


参考检索关键词(建议文献搜索):

  • Papain review
  • Papain history
  • Papain production from papaya latex
  • Carica papaya latex papain
  • Handbook of Proteolytic Enzymes Papain
  • Papain purification
  • Papain applications in food industry
  • 木瓜蛋白酶
  • 木瓜蛋白酶 制备工艺
  • 木瓜蛋白酶 应用综述
  • 木瓜乳汁 蛋白酶
  • 木瓜蛋白酶 食品工业应用


+
27-07
2026
为什么有些面粉加工要“拼命加酶”,有些却要“想尽办法灭酶”?

宋宵因从吃到用了解酶——为什么有些面粉加工非要消灭生物酶?

很多人都知道,现代面粉深加工离不开生物酶。

做面包,要加α-淀粉酶、木聚糖酶、脂肪酶,让面团更蓬松、柔软;做馒头,要利用酶改善发酵;甚至挂面、速冻食品也大量使用各种酶制剂。

于是很多人形成一个印象:酶越多越好。

其实,事实并不一定如此。

在食品工业里,有一大类产品,工程师每天想的事情不是"如何添加酶",而是:

"怎样让酶赶快失活!"

今天,我们就聊聊食品工业里那些"酶越少越好"的产品。

一、为什么酶有时候反而是"敌人"?

酶本质上就是生物催化剂,只要温度、水分、pH合适,它就会不停工作。问题来了:对于很多产品来说,我们希望加工结束后,一切都保持稳定。

如果酶继续工作,就意味着:

  • 淀粉继续被降解
  • 蛋白继续被分解
  • 脂肪继续被水解
  • 色素继续被氧化

产品品质自然越来越差。

因此,对于许多食品来说:

加工完成以后,酶必须停止工作。

这也是食品工业中一个非常重要的理念:

需要酶的时候,让它充分发挥作用;不需要的时候,让它彻底失活。


二、哪些面粉加工产品最怕酶?

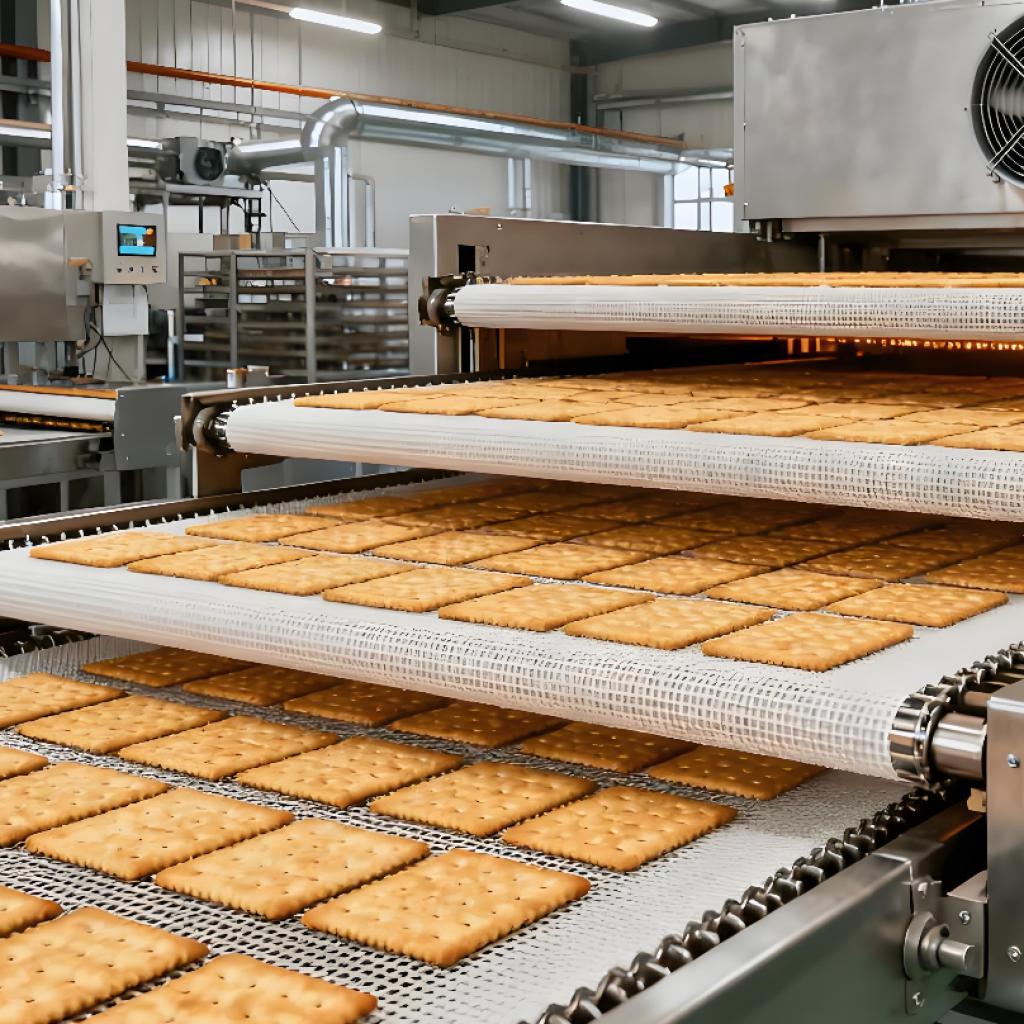
① 饼干——最典型的"怕酶"产品

很多人不知道:饼干其实最怕α-淀粉酶。

原因很简单,饼干和面包最大的区别是什么?

面包需要:

  • 高发酵
  • 高持气性
  • 松软组织

所以希望淀粉不断产生糖,为酵母提供营养。

但是饼干不同,饼干追求的是:

  • 花纹清晰
  • 外形稳定
  • 酥脆口感
  • 水分低
  • 保质期长

如果淀粉酶活性过高,会发生什么?

第一:

淀粉不断被分解。

面团越来越软。

压花容易塌陷。

第二:

产生大量还原糖。

烘烤时美拉德反应过强。

容易颜色过深。

第三:

吸湿性增加。

饼干更容易返潮。

酥脆度下降。

第四:

储藏期间品质持续变化。

因此,饼干企业通常要求:

面粉酶活不能太高。

不少高档饼干甚至专门选用:

低 Falling Number(降落数适宜)、低α-淀粉酶活性的专用粉。

② 苏打饼干、曲奇——蛋白酶也不能乱来

蛋白酶可以切断面筋蛋白,适量时面团容易压片。

但是过量以后:

  • 面团失去韧性
  • 花纹保持不好
  • 成品容易断裂
  • 表面粗糙

因此,很多曲奇和苏打饼干生产都严格控制蛋白酶来源。

天然面粉中的蛋白酶活性过高,同样会影响产品稳定性。

③ 面粉储藏——最怕脂肪酶

这其实是整个制粉行业最关注的问题之一。小麦虽然脂肪含量不高。但是胚芽里富含:

  • 甘油三酯
  • 不饱和脂肪酸

一旦磨粉以后:细胞被破坏,脂肪酶立即开始工作。它会把油脂分解成游离脂肪酸。随后,脂氧合酶(LOX)继续作用。最终产生:

  • 哈喇味
  • 陈味
  • 氧化味

这就是:面粉酸败。

近年来大量研究认为:

脂肪酶是面粉酸败的"第一启动者",脂氧合酶则进一步加速氧化和异味形成。

④ 全麦粉——比普通面粉更怕酶

为什么全麦粉保质期明显更短?

很多消费者以为只是因为油脂多。

实际上真正的问题是:

酶更多。

因为麸皮和胚芽保留下来以后,同时保留了:

  • 脂肪酶
  • 脂氧合酶
  • 过氧化物酶

它们共同作用,不断促进脂肪氧化。

所以,全麦粉非常容易产生:

  • 哈喇味
  • 苦味
  • 油耗味

因此,很多厂家都会采用各种方法降低酶活,提高货架期。

⑤ 自热冲调谷物粉

例如:

  • 熟面粉
  • 冲饮谷物粉
  • 婴幼儿谷物食品
  • 即食麦片粉

这类产品水分虽然低,但储藏时间往往长达一年以上。如果残留淀粉酶、脂肪酶和蛋白酶长期储存过程中仍可能缓慢发生反应。

因此,企业通常都会先进行熟化处理,让酶基本失活。

三、食品工业怎样让酶"停下来"?

既然酶有时候有害,工业上有哪些办法?主要有下面几类。

方法一:热处理(最常见)

这是应用最广的方法,包括:

  • 烘焙
  • 焙炒
  • 蒸汽处理
  • 微波处理
  • 挤压熟化

高温会破坏酶蛋白空间结构,酶失去催化能力。例如全麦粉预焙炒,就是为了降低脂肪酶和脂氧合酶的活性。

方法二:降低水分

没有水,大部分酶几乎无法正常催化。

因此,饼干一般控制水分:2%~5%。

面粉一般控制:13%左右。

降低水分虽然不能完全灭酶,却可以显著降低反应速度。

方法三:低温储藏

低温不是灭酶,而是让酶"睡觉"。

很多高端全麦粉、冷冻面团、预拌粉,都采用低温物流,目的就是延缓各种酶促反应。

方法四:超临界CO₂处理(新技术)

近年来,食品工业开始研究:超临界二氧化碳。

它可以在较低温度下,降低脂肪酶、α-淀粉酶、蛋白酶、过氧化物酶的活性。同时还能减少微生物,属于比较有前景的新型灭酶技术。

方法五:选择低酶活原料

不少大型饼干企业,采购时首先检测:

  • 降落数(Falling Number)
  • α-淀粉酶活性
  • 脂肪酶相关指标

从源头避免高酶活面粉进入生产。


四、酶没有好坏,关键在"什么时候工作"

食品工业有一句很经典的话:

好的酶,不是一直工作,而是在该工作的时候工作。

做面包,希望酶越活跃越好。

做饼干,希望酶尽快停止。

储藏面粉,希望酶越安静越好。

这也是现代食品工程的重要思想:

控制酶,而不是单纯使用酶。

未来,随着精准酶工程、智能加工和新型灭酶技术的发展,食品工业将更加精确地调控酶的活性窗口:既充分利用其改善加工性能的优势,又避免其在储藏和后续加工中的负面作用,从而实现品质、风味和货架期之间的最佳平衡。


参考文献方向

  1. Bakery Products Science and Technology(Bakery Enzymes 章节)
  2. Enzyme applications in baking: From dough development to shelf-life extension (2024)
  3. Review: Enzyme inactivation during heat processing of food-stuffs
  4. Enzyme Activity and Physiochemical Properties of Flour after Supercritical Carbon Dioxide Processing
  5. Rogue Enzymes at Work: Lipase and Lipoxygenase in Flour Rancidity (2025)

建议搜索关键词

为了进一步查阅相关论文或专利,可使用以下中英文关键词组合:

中文关键词:

  • 面粉 内源酶 活性 控制
  • 面粉 脂肪酶 酸败
  • 面粉 脂氧合酶 氧化
  • 饼干 专用粉 α-淀粉酶
  • 全麦粉 酶失活
  • 面粉 热处理 灭酶
  • 超临界二氧化碳 面粉 酶失活
  • 面粉 降落数 α-淀粉酶
  • 烘焙食品 酶控制
  • 面粉 储藏 酶促褐变

英文关键词:

  • flour endogenous enzymes
  • wheat flour enzyme inactivation
  • biscuit flour alpha-amylase activity
  • wheat flour lipase rancidity
  • flour lipoxygenase oxidation
  • enzyme inactivation flour processing
  • heat inactivation flour enzymes
  • supercritical CO2 flour enzyme inactivation
  • falling number alpha-amylase biscuit flour
  • whole wheat flour shelf life lipase


+
查看更多项目 ➤
已经加载所有内容